
儿童流感嗜血杆菌的流行病学变迁与抗菌药物耐药性动态:一项五年回顾性研究(2020–2024)
刘诗平 张羽锋 刘双娟 李金璐 田仁强 袁梦菲 余鹏(通讯作者)
重庆市秀山土家族苗族自治县人民医院,409900
- DOI:
10.13738/j.cnki.acc.qklw60536
- 专辑:
科学Ⅰ辑;信息科技
- 专题:
信息、科学;综合科技
- 分类号:
G90;N92
摘要:目的 分析2020年至2024年某地区0-14岁儿童患者中流感嗜血杆菌(Hin)的临床分离率、年龄与季节分布特征,并监测其对抗菌药物的耐药性变迁及β-内酰胺酶耐药表型,为临床合理用药提供依据。方法 回顾性收集2020年1月至2024年12月住院患儿送检标本中分离的非重复Hin菌株。采用微量肉汤稀释法进行药敏试验。β-内酰胺酶检测采用头孢硝噻吩纸片法。依据CLSI M100标准判读结果。使用WHONET 5.6和SPSS软件进行数据分析。结果 研究期间共分离病原菌2411株,其中Hin 766株(平均检出率31.7%)。Hin在革兰阴性菌中的比例从2020年的33.3%显著上升至2024年的57.8%。Hin感染高发于6月龄至3岁婴幼儿,且在春季和冬季出现流行高峰。药敏监测显示,Hin对氨苄西林的耐药率平均为75.9%,且年间差异有统计学意义(P=0.043)。对阿莫西林/克拉维酸和头孢呋辛的耐药率波动显著(P<0.001)。β-内酰胺酶阳性率从2020年的63.9%升至2022年的78.5%,2024年降至71.8%。β-内酰胺酶阳性菌株对氨苄西林、头孢呋辛、头孢克洛及复方新诺明等药物的耐药率均极显著高于阴性菌株(P<0.01)。头孢噻肟、头孢曲松、左氧氟沙星、莫西沙星和利福平在整个研究期间保持极高敏感率(>97%)。结论 2020-2024年间,Hin已成为本地区儿童感染,尤其是婴幼儿呼吸道感染的重要病原菌,其检出比例在G⁻菌中持续上升,耐药形势严峻。氨苄西林不应用于经验性治疗。第三代头孢菌素(头孢曲松、头孢噻肟)保持高度抗菌活性,是治疗的首选药物。持续监测Hin的耐药性对于指导临床合理用药至关重要。
关键词:流感嗜血杆菌;儿童;耐药性监测;β-内酰胺酶;抗菌药物
△通信作者:余鹏,18311752575,E-mail:yupengmot11@163.com。
Epidemiological Shifts and Antimicrobial Resistance Dynamics of Haemophilus influenzae in Children: A Five-Year Retrospective Study (2020–2024)
Liu Shiping, Zhang Yufeng, Liu Shuangjuan, Li Jinlu, Tian Renqiang, Yuan Mengfei, Yu Peng*
Department of Clinical Laboratory, Xiushan County People's Hospital, Chongqing, 409900, China
*Corresponding author: 18311752575,E-mail: yupengmot11@163.com
Abstract: Objective To analyze the clinical isolation rate, age and seasonal distribution, and antimicrobial resistance trends of Haemophilus influenzae (Hin) in children aged 0–14 years from 2020 to 2024, and to monitor β-lactamase production and resistance patterns, providing evidence for rational antimicrobial use in clinical practice. Methods A retrospective analysis was conducted on non-duplicate Hin isolates obtained from hospitalized children from January 2020 to December 2024. Antimicrobial susceptibility testing was performed using the broth microdilution method. β-lactamase was detected by the nitrocefin disk method. Results were interpreted according to CLSI M100 guidelines. Data analysis was performed using WHONET 5.6 and SPSS software. Results A total of 2411 pathogenic strains were isolated, of which 766 were Hin (average detection rate 31.7%). The proportion of Hin among Gram-negative bacteria increased significantly from 33.3% in 2020 to 57.8% in 2024. Hin infections were most prevalent in infants and young children aged 6 months to 3 years, with seasonal peaks observed in spring and winter. Susceptibility monitoring revealed an average ampicillin resistance rate of 75.9%, with significant annual variation (P=0.043). Resistance rates to amoxicillin/clavulanate and cefuroxime fluctuated significantly (P<0.001). The β-lactamase positivity rate increased from 63.9% in 2020 to a peak of 78.5% in 2022, before declining to 71.8% in 2024. β-lactamase-positive strains exhibited significantly higher resistance rates to ampicillin, cefuroxime, cefaclor, and trimethoprim-sulfamethoxazole compared to negative strains (P<0.01). Ceftriaxone, cefotaxime, levofloxacin, moxifloxacin, and rifampin maintained exceptionally high susceptibility rates (>97%) throughout the study period. Conclusion Between 2020 and 2024, Hin has become a major pathogen in pediatric infections, particularly respiratory tract infections in young children, in this region, with its proportion among G- bacteria continuously rising and a severe resistance profile. Ampicillin is not suitable for empirical treatment. Third-generation cephalosporins (ceftriaxone, cefotaxime) remain highly effective and are the preferred therapeutic agents. Continuous monitoring of Hin resistance is crucial for guiding rational clinical antimicrobial use.
Keywords: Haemophilus influenzae; Children; Drug Resistance Monitoring; β-lactamase; Antimicrobial Agents
引言
流感嗜血杆菌(Haemophilus influenzae, Hin)是一种专性寄生于人类的革兰阴性短小杆菌,生长需要血红素(X因子)等特殊营养物质,主要存在于人类上呼吸道中,既可以是共生菌,也可以是病原体[1, 2]。根据荚膜多糖抗原的不同,流感嗜血杆菌可分为a至f六种血清型,随着Hib疫苗的广泛接种,Hib引起的侵袭性疾病显著减少,但由非分型流感嗜血杆菌(nontypeable Haemophilus influenzae, NTHi)引起的感染变得日益重要,NTHi不像Hib那样表达多糖荚膜[3-7]。它是儿童社区获得性肺炎、急性中耳炎、鼻窦炎和菌血症等重要病原体,亦是导致婴幼儿细菌性脑膜炎的主要原因之一,可能引发严重的神经系统后遗症[3, 4, 8-14],仍然是全球范围内儿童发病的重要原因。
近年来,随着抗菌药物的广泛应用,流感嗜血杆菌(Hin)的耐药性问题日益严重,给临床治疗带来严峻挑战[3, 4, 8-14]。Hin对氨苄西林的耐药机制主要包括产生β-内酰胺酶和青霉素结合蛋白3(PBP3)的改变,其中TEM型β-内酰胺酶是主要类型[15, 18, 19]。在意大利的一项研究中,392株Hin中有12.2%为β-内酰胺酶生产者,且所有这些β-内酰胺酶均属于TEM型[20]。PBP3的改变也导致氨苄西林耐药,ftsI基因的突变是BLNAR株产生耐药性的关键关键因素[20]。Hin的耐药率在全球范围内呈现上升趋势,并且在不同地区和年龄群体中存在显著差异[22]。特别是在儿童群体中,由于其免疫系统尚未完全发育,呼吸道感染频繁,Hin感染的耐药情况更为严重[16, 23, 24]。 在中国,不同地区Hin的耐药率差异显著[22, 25, 26]。例如,对山东省2017年至2019年Hin抗菌药物耐药性监测数据显示,该菌株的耐药性上升趋势问题持续存在[27]。在中国西南地区儿童中,Hin是主要的儿科细菌性肺炎病原体之一,β-内酰胺类抗生素耐药株的流行率急剧上升[24]。广州的一项研究也旨在调查Hin的分子流行病学和抗生素耐药性,以了解其在华南地区的流行趋势[26]。这些研究都表明,儿童感染Hin后的耐药性问题不容忽视,需要加强监测并采取相应的干预措施[16, 24, 25]。全球对抗生素耐药性的关注日益增加[28, 29]。
为了解本地区儿童中Hin感染的流行病学特征及耐药性变迁,为临床经验性抗感染治疗提供最新的本地化数据,本研究回顾性分析了2020年1月至2024年12月从0-14岁住院患儿中分离的Hin菌株的检出情况、年龄与季节分布,并系统监测了其对抗菌药物的耐药性及β-内酰胺酶表型特征。
1资料与方法
1.1 菌株来源
本研究为回顾性研究。菌株来源于2020年1月至2024年12月,某地区0-14岁住院患儿送检的各类临床标本(包括痰液、肺泡灌洗液、血液等)。剔除同一患者相同部位的重复菌株,共收集非重复Hin菌株766株进行后续分析。本研究已通过秀山县人民医院伦理委员会批准并免除知情同意(批件号:2022XYLL-KY-019)。
1.2 菌株鉴定与药敏试验
菌株的分离、培养与鉴定由实验室按照标准操作规程进行。采集合格痰液或支气管肺泡灌洗液标本,接种于巧克力琼脂平板,置于35~37℃、5% CO₂ 培养箱中培养24~48 h。挑取疑似菌落(呈无色透明、露滴状菌落)进行革兰染色,镜检为革兰阴性短小杆菌。进一步通过“卫星试验”和X、V因子需求试验进行生化鉴定,使用VITEK 2 Compact NH卡自动化微生物鉴定系统或对可疑菌落使用基质辅助激光解吸电离飞行时间质谱(MALDI-TOF MS)进行确认。微量肉汤稀释法进行药敏试验。试验操作和结果判读严格遵循美国临床和实验室标准化协会(CLSI)当年度的M100文件标准。质控菌株为流感嗜血杆菌ATCC 49247。
1.3 β-内酰胺酶检测
采用头孢硝噻吩纸片法检测Hin的β-内酰胺酶。用无菌接种环刮取菌落涂抹于头孢硝噻吩纸片上,10分钟内纸片变红色为阳性,不变色为阴性,以金黄色葡萄球菌ATCC29213作为阳性对照。
1.4 统计学分析
采用WHONET 5.6软件进行药敏数据的初步汇总和分析。使用SPSS 27.0软件进行统计学处理。计数资料以频数和百分比(%)表示,组间比较采用χ²检验或Fisher精确检验。以P<0.05为差异具有统计学意义。
2 结果
2.1 Hin的检出率及在革兰阴性菌中的分布
2020-2024年研究期间,共从0-14岁住院患儿中检出病原菌2411株,其中革兰阴性菌(G⁻)1564株,占病原菌总数的65.0%。流感嗜血杆菌(Hin)共检出766株,平均检出率为31.7%。Hin 在全部病原菌中的检出率由2020年的21.3%(83/389)升至2024年峰值39.9%(266/666),2023年短暂回落至24.0%(132/551),2024年再次回升至39.9%(266/666)。相应地,Hin在G⁻菌中的比例从2020年的33.3%显著上升至2024年的57.8%,五年平均47.7 %(表1)。
表1 流感嗜血杆菌检出率
年份 | 病原菌总数 | G- | Hin | G-中比例(%) | ||
株数(例) | 株数(例) | 检出率(%) | 株数(例) | 检出率(%) | ||
2020年 | 389 | 249 | 64.0 | 83 | 21.3 | 33.3 |
2021年 | 422 | 293 | 69.4 | 136 | 32.2 | 46.4 |
2022年 | 383 | 261 | 68.1 | 149 | 38.9 | 57.1 |
2023年 | 551 | 301 | 54.6 | 132 | 24.0 | 43.9 |
2024年 | 666 | 460 | 69.1 | 266 | 39.9 | 57.8 |
合计 | 2411 | 1564 | 766 | |||
平均 | 482 | 313 | 65.0 | 153 | 31.7 | 47.7 |
注:病原菌总数是0-14岁儿童住院患者检出阳性菌和阴性菌总数,革兰阴性菌(G-)检出率是指检出的革兰阴性菌占病原菌总数的比值,Hin检出率是Hin检测株数与病原菌总数的比值,G-中比例是指Hin检测株数与革兰阴性菌总数比值。 | ||||||
2.2 Hin分离率的年龄与季节分布
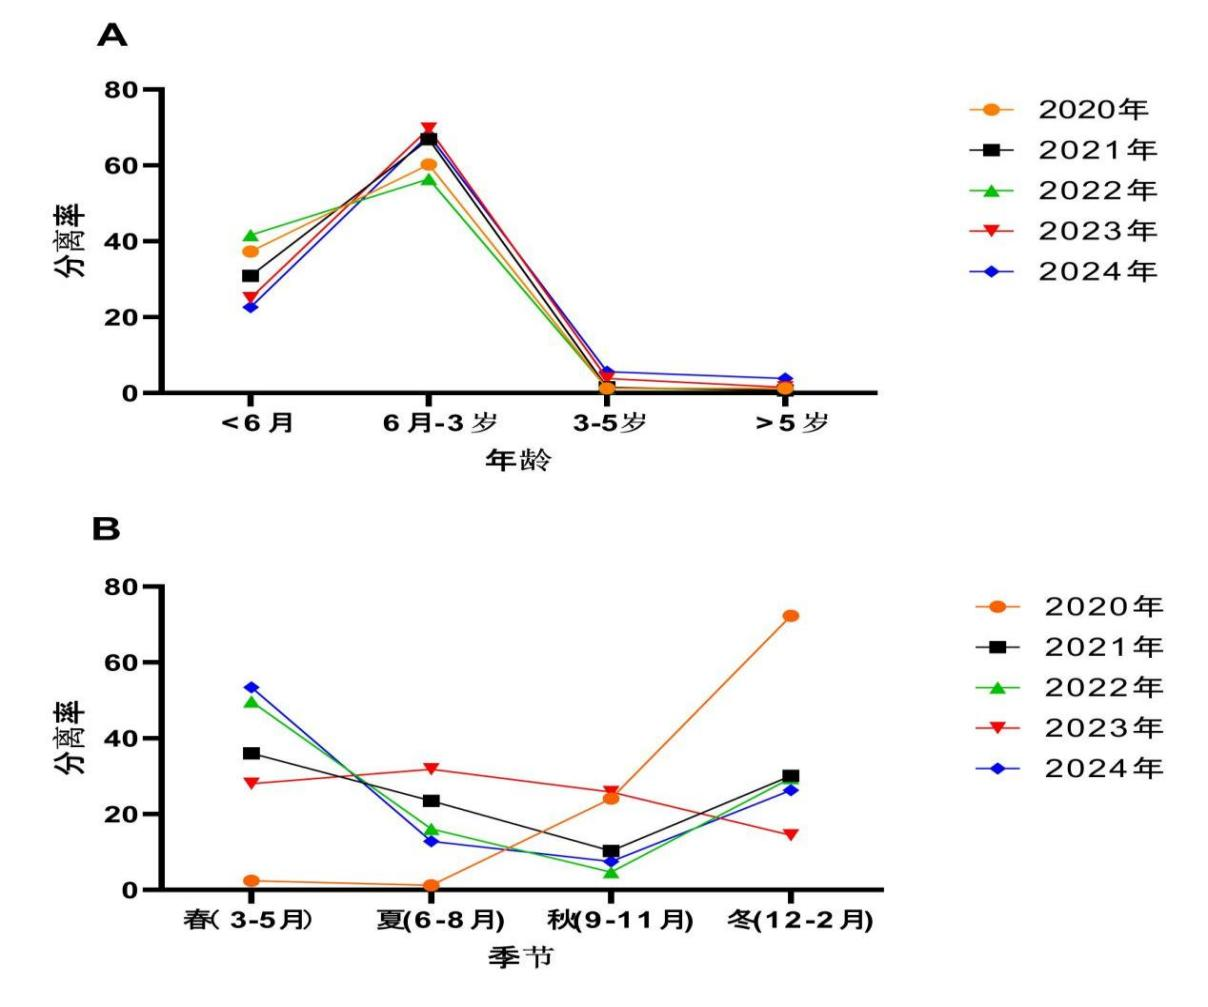
Hin感染呈现出明显的年龄和季节性分布特征。在年龄分布方面,Hin分离率在6月龄至3岁的婴幼儿组中最高,其次是<6月龄组。在季节分布方面,Hin的分离率在春季(3-5月)和冬季(12-2月)显著高于夏秋季,提示其感染存在季节性高峰(图1)。
2.3 抗菌药物耐药性趋势
2020-2024年间,Hin对多种抗菌药物的耐药率发生了显著变化。对氨苄西林的耐药率维持在较高水平,波动于68.5%-84.6%,差异有统计学意义(P=0.043),五年平均 75.9%(441/581)。阿莫西林-克拉维酸耐药率2020年为16.1 %,2022年降至2.9%,2024 年反弹至 17.2%(P<0.001)。第二代口服头孢菌素耐药率最高,头孢克洛49.5%(268/541)、头孢呋辛36.6%(212/580),且呈上升趋势(P<0.001)。表明对阿莫西林/克拉维酸和头孢呋辛的耐药率存在显著波动。相比之下,碳青霉烯类、氟喹诺酮类、哌拉西林他唑巴坦耐药率均为为 0%,
而第三、四代头孢(头孢曲松、头孢噻肟、头孢他啶、头孢吡肟)、氯霉素、四环素的耐药率维持在较低水平(低于6%)(表2)。
2.4 β-内酰胺酶表型与耐药机制分析
产β-内酰胺酶是Hin耐药的重要机制。766株Hin中542株(70.8%)β-内酰胺酶阳性,年度阳性率 63.9%-78.5%,研究期间,β-内酰胺酶阳性率(P%)在2022年达到峰值(78.5%),2024年略有下降(71.8%),无下降趋势。β-内酰胺酶阴性氨苄西林耐药率(BLNAR%)各年均 ≤6.8%,在2020-2024年间波动,2024年最低(2.6%)。β-内酰胺酶阳性氨苄西林耐药率(BLPAR%)在39.5%-71.8%,是主要的耐药表型,尤其在2022年高达71.8%,2024年下降至39.5%。β-内酰胺酶阴性的阿莫西林/克拉维酸耐药率(BLNACR%)各年均≤4.5%。 β-内酰胺酶阳性的阿莫西林/克拉维酸耐药率(BLPACR%)在2023年最高(11.4%)(表3)。
表3 Hin菌株耐药表型变化
2020年 | 2021年 | 2022年 | 2023年 | 2024年 | |
NB | 83 | 136 | 149 | 132 | 266 |
P | 53 | 91 | 117 | 90 | 191 |
P% | 63.9 | 66.9 | 78.5 | 68.2 | 71.8 |
BLNAR% | 6.0 | 4.4 | 5.4 | 6.8 | 2.6 |
BLPAR% | 47.0 | 50.0 | 71.8 | 65.9 | 39.5 |
BLANCR% | 1.2 | 0.0 | 0.0 | 4.5 | 0.8 |
BLPACR% | 10.8 | 4.4 | 2.7 | 11.4 | 8.6 |
NB: β-内酰胺酶检测菌株数; P:β-内酰胺酶产菌阳性数; BLNAR%:β-内酰胺酶阴性氨苄西林耐药菌株的耐药率,BLPAR%:β-内酰胺酶阳性氨苄西林耐药率;BLNACR%:β-内酰胺酶阴性阿莫西林克拉维酸耐药率;BLPACR:β-内酰胺酶阳性阿莫西林克拉维酸耐药率。 | |||||
进一步分析表明(表4),β-内酰胺酶阳性菌株对氨苄西林、阿莫西林-克拉维酸、头孢呋辛、头孢克洛、复方新诺明、氯霉素、四环素的耐药率均极显著高于阴性菌株(P<0.01)。产酶株对氨苄西林耐药率 99.0 %(406/410),显著高于非产酶株 20.5 %(35/171)(P < 0.001),证实β-内酰胺酶的产生是导致Hin对β-内酰胺类药物耐药的关键因素。第三、四代头孢、碳青霉烯类及氟喹诺酮类在两组中耐药率均为0 %。
表4:流感嗜血杆菌产酶与不产酶耐药率比较[株(%)]
药物名称 | β内酰胺酶阳性菌株耐药率%(n/N) | β内酰胺酶阴性菌株耐药率%(n/N) | χ²值 | P值 |
氨苄西林 | 99.0(406/410) | 20.5(35/171) | 401.314204 | <0.001 |
阿莫西林/克拉维酸 | 13.8(57/412) | 5.3(9/171) | 8.623 | 0.003 |
氨苄西林/舒巴坦 | 88.9(8/9) | 66.7(2/3) | - | - |
哌拉西林/他唑巴坦 | 0(0/3) | 66.7(2/3) | - | - |
头孢呋辛 | 39.1(160/409) | 19.3(33/171) | 24.414 | <0.001 |
头孢他啶 | 0.0(0/3) | 0.0(0/3) | - | - |
头孢曲松 | 0.0(0/27) | 0.0(0/13) | - | - |
头孢噻肟 | 0.0(0/385) | 0.0(0/158) | - | - |
头孢吡肟 | 0.0(0/9) | 0.0(0/3) | - | - |
头孢克洛 | 56.4(216/383) | 22.8(36/158) | 67.565 | <0.001 |
头孢克肟 | 0.0(0/8) | 0.0(0/3) | - | - |
氨曲南 | 0.0(0/9) | 0.0(0/3) | - | - |
美洛培南 | 0.0(0/9) | 0.0(0/3) | - | - |
利福平 | 0.5(2/394) | 0.0(0/161) | - | - |
左旋氧氟沙星 | 0.0(0/27) | 0.0(0/13) | - | - |
莫西沙星 | 0.0(0/248) | 0.0(0/96) | - | - |
氧氟沙星 | 0.0(0/10) | 0.0(0/5) | - | - |
复方新诺明 | 73.8(304/412) | 55.0(94/171) | 24.115 | <0.001 |
阿奇霉素 | 0.0(0/9) | 0.0(0/3) | - | - |
氯霉素 | 7.4(29/394) | 0.6(1/161) | 10.27 | 0.001 |
四环素 | 6.3(22/351) | 0.7(1/145) | 7.441 | 0.006 |
n:耐药株数,N:开展药敏实验总株数。
3. 讨论
本研究通过对2020-2024年的0-14岁儿童分离Hin的监测,揭示了其在本地区感染的流行病学及耐药特征。主要发现了高发年龄在6月龄-3岁,高发季节在冬/春季节。耐药表型中氨苄西林(75.9%)、头孢克洛(49.5%)、复方新诺明(68.3%)呈现高耐药率,三代头孢、碳青霉烯、氟喹诺酮类保持高度敏感。产β内酰胺酶(2024年71.8%)是主要耐药机制,核心发现了β内酰胺酶阳性是导致对氨苄西林、部分头孢菌素及复方新诺明高耐药的主要机制。
在检出率、年龄与季节特征的结果显示,Hin在儿童全部病原菌中的占比由21.3%升至39.9%,显著高于2009-2013年重庆单中心水平(8.8%)[30]。尤其是革兰阴性菌中的构成比持续快速上升,至2024年已超过半数(57.8%),凸显了其在儿童感染性疾病中日益重要的病原学地位,这一趋势与国内其他地区的报道有差异[31-33]。本研究的Hin感染同样呈现出明显的年龄和季节聚集性,主要累及6月龄至3岁的婴幼儿,与王琴报道的一致[34],并在冬春季高发,这与婴幼儿免疫系统尚未成熟以及冬春季呼吸道病毒感染高发可能密切相关[35, 36]。另外我们也观察到,<6月龄患儿分离率保持最高,>5岁后迅速下降,与母体抗体衰减及IgG/IgM对NTHi荚膜及外膜蛋白应答不足相符[32, 34]。季节分布呈典型的冬春双峰分布,与山东、湖北监测一致[37, 38],提示可能气候(低温、干燥)-病毒协同驱动模式,促进病原传播[39]。2023年出现短暂下降,可能与当年春季SARS-CoV-2 Omicron高峰期间佩戴口罩、学校停课导致呼吸道病毒与细菌共传播链中断有关[40, 41],但2024年迅速反弹,提示一旦恢复常规社交,Hin流行强度可快速恢复至基线,证实气候-病毒协同驱动模式未根本改变[42, 43]。
在耐药机制与表型变迁方面,产β-内酰胺酶率由2020年63.9%升至2024年71.8%,明显高于2009-2013年重庆(41.7%)[30],与2017-2019年山东(76.6%)的历史水平接近[27]。更为重要的是,尽管BLNAR菌株的检出率在本研究中相对较低,比例虽整体<7%,但五年间绝对株数随总检出量同步增加;其存在提示了由ftsI基因编码的PBP3改变介导的非酶耐药机制已经出现[44, 45],需警惕其可能带来的治疗挑战以及从高水平耐药地区(如日本[46])传播的风险。BLPAR(产酶且氨苄西林耐药)始终占产酶株的>90%,提示TEM-1型质粒酶仍为主导机制,但PBP3突变(ROB-1或ftsI基因替代)可能已悄然累积。头孢克洛、头孢呋辛平均耐药率分别高达49.5%与36.6%,显著高于2013年重庆(9.4%与3.4%)[30],但与2019年山东的头孢呋辛耐药率低(57.1%)[27]。且产酶株对二代的耐药率>70%,说明传统口服二代头孢已不适合作为重庆地区儿童Hin经验用药。本地区Hin对氨苄西林的高耐药率(平均75.9%)与国内多项监测结果一致[47-50],且年间波动具有统计学意义,提示氨苄西林已完全不适合作为本地区儿童Hin感染的经验治疗药物。β-内酰胺酶阳性是介导氨苄西林耐药的主要机制,其阳性率在监测期内处于较高水平(63.9%-78.5%)。值得注意的是,β-内酰胺酶阳性菌株对多种抗菌药物(如氨苄西林、头孢呋辛、头孢克洛、复方新诺明)的耐药率均显著高于阴性菌株,这与β-内酰胺酶基因(如blaTEM-1)常与其它耐药基因(如对磺胺类、四环素类耐药的基因)位于同一可移动遗传元件上有关[51, 52]。本地区流感嗜血杆菌对阿莫西林/克拉维酸近五年平均耐药率为11.3%,这一数据显著高于欧美多数地区(通常<5%)[20],而与日本、韩国等东亚国家的高耐药趋势相近[53],提示我们正面临区域性的耐药挑战。这一耐药率背后是复杂的机制:它并非仅由传统的β-内酰胺酶引起,更可能包含了青霉素结合蛋白改变(BLNAR) 以及兼具两种机制的BLPACR菌株的流行。这类菌株对多种β-内酰胺类药物敏感性同步下降,是导致经验性治疗失败的主要风险。因此,对于社区获得性呼吸道感染,阿莫西林克拉维酸虽可作为一线药物,但需严密监测药敏MIC值,以确保患者临床疗效。
令人欣慰的是,在我们进行的为期五年的监测研究中,第三代头孢菌素(如头孢曲松和头孢噻肟)以及喹诺酮类药物(例如莫西沙星)始终展现出极高的(>97%)体外抗菌活性,这一结果与国内大多数相关监测报告的结论高度一致[47, 48]。这一发现强烈支持了当前专家共识所提出的建议,明确指出第三代头孢菌素应被视为儿童严重Hin感染的首选治疗药物[54]。然而,关于碳青霉烯类耐药的零星报道则提醒我们[55],必须对罕见耐药表型的出现保持高度警惕,以确保治疗的有效性和安全性。头孢曲松、头孢噻肟、美罗培南、左氧氟沙星五年耐药率均为0%,且MIC90保持在CLSI敏感折点以下(≤1 mg/L),第三代头孢、碳青霉烯与氟喹诺酮的稳定性与国内外报道一致[56]。值得注意的是,儿童株对氟喹诺酮的耐药率持续为0%,而成人株在2017-2019年山东监测中已出现4%–5%的非野生型[27],提示喹诺酮类在儿童限制使用策略有效延缓了耐药选择。碳青霉烯保持100%敏感,与ISPED 2017-2019全国多中心结果相符[56],但其应仅限于重症或二线治疗,以避免诱导碳青霉烯耐药肠杆菌目交叉选择。复方新诺明耐药率五年平均68.3%,与2009-2013年重庆(77%)接近[30],且产酶株73.8%的耐药,提示磺胺类已完全丧失经验用药价值。
血清型与疫苗启示 尽管本研究未对2020-2024年分离株进行血清型鉴定,但2009–2013年重庆数据显示NTHi占92.8%[30],Hib仅占0.4%,提示随着Hib疫苗纳入计划免疫,NTHi成为了儿童感染的主导力量。当前我国尚未引入含NTHi外膜蛋白P6、P4或脂蛋白D(PD)的广谱Hi疫苗,鉴于NTHi对β-内酰胺与大环内酯双重耐药快速上升,推动多组分Hi疫苗研发与人群评估应列入优先议程。
临床与公共卫生意义, 基于上述结果,本研究强烈建议: (1) 将第三代头孢(头孢曲松/头孢噻肟)列为重庆及周边地区儿童Hin重症感染首选经验用药; (2) 门诊轻-中度感染可优先考虑阿莫西林-克拉维酸,但需先行β-内酰胺酶快速检测,若阳性则直接升级至三代口服头孢(头孢地尼/头孢泊肟);(3) 阿奇霉素仅用于非典型病原体混合感染,且应结合大环内酯耐药监测; (4) 复方新诺明、氨苄西林、头孢克洛/呋辛不再推荐用于任何年龄组Hi经验治疗; (5) 持续扩大以儿童为核心的产酶率、BLNAR/BLPACR及血清型监测网络,为将来引入NTHi疫苗提供基线数据。
研究局限与展望, 本研究为回顾性监测,结果外推需谨慎,未能获取临床结局与用药应答信息;血清型、MLST及全基因组测序数据缺失,限制了耐药克隆传播与毒力因子关联分析;单中心研究可能高估区域耐药水平。未来需前瞻性、多中心队列整合临床预后、药动学/药效学(PK/PD)及高通量测序,以精确界定耐药突变与治疗失败之间的因果关系,并评估新型疫苗干预对Hin耐药生态的长期影响。 以更深入地了解Hin的传播克隆和耐药机制演化。
结论:
综上所述,2020-2024年间,流感嗜血杆菌在本地区儿童感染呈现高检出、高产酶、高BLPAR及快速上升的头孢克洛耐药特征。尤其是婴幼儿中是一种常见且重要性不断上升的病原体,其耐药形势严峻,特别是对氨苄西林、复方新诺明及部分二代头孢菌素。临床经验性治疗应避免使用氨苄西林。第三代头孢菌素(头孢曲松、头孢噻肟)、碳青霉烯、喹诺酮类药物(莫西沙星)仍是可靠的治疗选择。持续、系统地开展Hin耐药性监测,并加强抗菌药物管理(AMS),对于指导临床合理使用抗菌药物、遏制耐药菌株的播散具有至关重要的意义。持续分子与表型双重监测及疫苗策略前移,是遏制Hin耐药进一步恶化、保障儿童抗感染治疗成效的关键。
表2儿童流感嗜血杆菌受试抗菌药物的耐药率
抗菌药物 | 2020年 | 2021年 | 2022年 | 2023年 | 2024年 | 平均耐药率 | χ²值 | P值 |
耐药率%(n/N) | 耐药率%(n/N) | 耐药率%(n/N) | 耐药率%(n/N) | 耐药率%(n/N) | ||||
氨苄西林 | 73.3(44/60) | 68.5(74/108) | 84.6(115/136) | 72.7(96/132) | 77.2(112/145) | 75.9(441/581) | 9.88 | 0.043 |
阿莫西林/克拉维酸 | 16.1(10/62) | 5.6(6/108) | 2.9(4/136) | 15.9(21/132) | 17.2(25/145) | 11.3(66/583) | 22.34 | <0.001 |
氨苄西林/舒巴坦 | - | - | - | - | 66.7(8/12) | 66.7(8/12) | - | - |
哌拉西林/他唑巴坦 | - | - | - | - | 0(0/6) | 0(0/6) | - | - |
头孢呋辛 | 41.9(26/62) | 35.2(38/108) | 20.3(27/133) | 43.2(57/132) | 44.1(64/145) | 36.6(212/580) | 22.11 | <0.001 |
头孢他啶a | - | - | - | - | 33.3(2/6) | 0(0/6) | - | - |
头孢曲松a | 3.6(1/28) | - | - | - | 0(0/12) | 0(0/40) | - | - |
头孢噻肟a | 2.9(1/34) | 0(0/108) | 0(0/136) | 0.8(1/132) | 2.3(3/133) | 0(0/543) | - | - |
头孢吡肟 | - | - | - | - | 8.3(1/12) | 0(0/12) | - | - |
头孢克洛 | 37.5(12/32) | 51.9(56/108) | 29.4(40/136) | 55.3(73/132) | 65.4(87/133) | 49.5(268/541) | 39.29 | <0.001 |
头孢克肟a | - | - | - | - | 72.7(8/11) | 0(0/11) | - | - |
氨曲南a | - | - | - | - | 25.0(3/12) | 25.0(3/12) | - | - |
美洛培南 | - | - | - | - | 0(0/12) | 0(0/12) | - | - |
利福平a | 0(0/34) | 0.9(1/108) | 0.7(1/136) | 0(0/132) | 0.8(1/133) | 0.4(2/555) | - | - |
左旋氧氟沙星 | 0(0/28) | - | - | - | 0(0/15) | 0(0/40) | - | - |
莫西沙星 | - | - | 0(0/79) | 0(0/132) | 0(0/133) | 0(0/344) | - | - |
氧氟沙星 | - | - | - | - | 0(0/12) | 0(0/15) | - | - |
复方新诺明 | 66.1(41/62) | 74.1(80/108) | 72.8(99/136) | 64.3(85/132) | 64.1(93/145) | 68.3(398/583) | 5.15 | 0.272 |
阿奇霉素a | - | - | - | - | 50.0(6/12) | 0(0/12) | - | - |
氯霉素 | 5.9(2/34) | 5.6(6/108) | 6.6(9/136) | 3.0(4/132) | 6.2(9/145) | 5.4(30/555) | 2.05 | 0.727 |
四环素 | 0(0/32) | 3.7(4/108) | 2.2(3/136) | 7.2(7/97) | 7.3(9/1) | 4.6(23/496) | 7.04 | 0.134 |
a非敏感率。R/NS%,耐药/非敏感率%。N:开展药敏实验总株数,n:耐药株数。平均耐药率都不包括非敏感株。
参考文献
[1] Marrs C F, Krasan G P, McCrea K W, et al. Haemophilus influenzae - human specific bacteria[J]. Front Biosci, 2001,6(1):E41-E60.
[2] Bachiller Luque P, Eiros Bouza J M, Blanco Quirós A. [Clinical manifestations, diagnosis and treatment of Haemophilus influenzae infection][J]. An Med Interna, 2000,17(4):204-212.
[3] SUNAKAWA K, TAKEUCHI Y, IWATA S. Nontypeable Haemophilus influenzae (NTHi) Epidemiology[J]. Kansenshogaku Zasshi, 2011,85(3):227-237.
[4] Kalangi H, Ajit A A, Camins B, et al. Haemophilus influenzae serotype a meningitis in an elderly patient: A case report and literature review[J]. IDCases, 2024,38(e02094):e2094.
[5] Erwin A L, Smith A L. Nontypeable Haemophilus influenzae: understanding virulence and commensal behavior[J]. Trends in Microbiology, 2007,15(8):355-362.
[6] Shuel M, Law D, Skinner S, et al. Characterization of nontypeableHaemophilus influenzae collected from respiratory infections and invasive disease cases in Manitoba, Canada[J]. FEMS Immunology & Medical Microbiology, 2010,58(2):277-284.
[7] Langereis J D, de Jonge M I. Unraveling Haemophilus influenzae virulence mechanisms enable discovery of new targets for antimicrobials and vaccines[J]. Current Opinion in Infectious Diseases, 2020,33(3):231-237.
[8] Kostyanev T S, Sechanova L P. Virulence factors and mechanisms of antibiotic resistance of haemophilus influenzae[J]. Folia Medica, 2012,54(1):19-23.
[9] Hu Y, Lee P, Hsueh P, et al. Predominant role of Haemophilus influenzae in the association of conjunctivitis, acute otitis media and acute bacterial paranasal sinusitis in children[J]. Scientific Reports, 2021,11(1):11.
[10] Tristram S, Jacobs M R, Appelbaum P C. Antimicrobial Resistance inHaemophilus influenzae[J]. Clinical Microbiology Reviews, 2007,20(2):368-389.
[11] Murphy T F. Respiratory infections caused by non-typeable Haemophilus influenzae[J]. Current Opinion in Internal Medicine, 2003,2(3):260-265.
[12] Muhammad Shahzad Maqsood U, Hussain S, Asim Khurshid U. Haemophilus influenzae infection among children with acute bacterial meningitis.[J]. The Professional Medical Journal, 2021,28(11):1621-1625.
[13] Qureshi M A, Asad I, Chaudhary A, et al. Beta-lactamase-negative ampicillin-resistant Haemophilus influenzae type b meningitis in partially immunized immunocompetent child: a case report[J]. Journal of Medical Case Reports, 2021,15(1):433.
[14] Li W, Meng J, Xu H, et al. Meningitis and bacteremia caused by Haemophilus influenzae Type e in an immunocompetent child[J]. The Journal of Infection in Developing Countries, 2021,15(09):1356-1358.
[15] Diricks M, Petersen S, Bartels L, et al. Revisiting mutational resistance to ampicillin and cefotaxime in Haemophilus influenzae[J]. Genome Medicine, 2024,16(1):140.
[16] Xiao N, Qin J, Zhao X, et al. Molecular and Drug Resistance Characteristics of Haemophilus influenzae Carried by Pediatric Patients with Adenoid Hypertrophy[J]. Microorganisms, 2025,13(8):1764.
[17] Abbas A, Barkhouse A, Hackenberger D, et al. Antibiotic resistance: A key microbial survival mechanism that threatens public health[J]. Cell Host & Microbe, 2024,32(6):837-851.
[18] Jakubu V, Cechova M, Musilek M, et al. Amino acid substitutions in PBP3 inHaemophilus influenzae strains, their phenotypic detection and impact on resistance to β-lactams[J]. Journal of Antimicrobial Chemotherapy, 2025,80(4):980-987.
[19] Denizon M, Hong E, Terrade A, et al. A Hunt for the Resistance of Haemophilus influnezae to Beta-Lactams[J]. Antibiotics, 2024,13(8):761.
[20] Giufrè M, Cardines R, Marra M, et al. Antibiotic Susceptibility and Molecular Typing of Invasive Haemophilus influenzae Isolates, with Emergence of Ciprofloxacin Resistance, 2017–2021, Italy[J]. Microorganisms, 2023,11(2):315.
[21] Yalçın M, Tristram S, Bozdoğan B. Use of trans-complementation method to determine the effects of various ftsI mutations on β-lactamase-negative ampicillin-resistant (BLNAR) Haemophilus influenzae strains[J]. Archives of Microbiology, 2023,205(1):27.
[22] Zhou Y, Wang Y, Cheng J, et al. Molecular epidemiology and antimicrobial resistance of Haemophilus influenzae in Guiyang, Guizhou, China[J]. Frontiers in Public Health, 2022,10:947051.
[23] Xiao J, Su L, Chen X, et al. Molecular characteristics and biofilm formation capacity of nontypeable Haemophilus influenza strains isolated from lower respiratory tract in children[J]. Microbial Pathogenesis, 2024,190:106632.
[24] Yan L, Lee M, Zhou W, et al. Antibiotic Resistance of Hemophilus influenzae Isolated from Children in Southwest China[J]. Clinical Laboratory, 2023,69(7).
[25] Yuan M, Ma M, Jiang H, et al. Characterization of Serotypes and Molecular Drug Resistance Patterns ofHaemophilus influenzaein Kunming Children[J]. Polish Journal of Microbiology, 2023,72(2):125-131.
[26] Wen S, Mai Y, Chen X, et al. Molecular Epidemiology and Antibiotic Resistance Analysis of Non-Typeable Haemophilus influenzae (NTHi) in Guangzhou: A Representative City of Southern China[J]. Antibiotics, 2023,12(4):656.
[27] Yanmeng S, Mengyuan W, Zheng L I, et al. Antimicrobial resistance surveillance in the Haemophilus influenzae strains isolated in Shandong Province from 2017 to 2019[J]. Chinese Journal of Infection and Chemotherapy, 2023.
[28] Chen L, Kumar S, Wu H. A review of current antibiotic resistance and promising antibiotics with novel modes of action to combat antibiotic resistance[J]. Archives of Microbiology, 2023,205(11):356.
[29] Howard A, Reza N, Aston S, et al. Antimicrobial treatment imprecision: an outcome-based model to close the data-to-action loop[J]. Lancet Infect Dis, 2024,24(1):e47-e58.
[30] 景春梅, 王偲. 2009-2013年重庆地区儿童感染流感嗜血杆菌的耐药性及血清型分析[J]. 第三军医大学学报, 2014,36(23):2400-2403.
[31] ZHAO C, NI J, CAO B, et al. Comparative analysis of distribution and drug resistance of pathogenic Gram negative bacteria in lower respiratory tract infection of children and adult[J]. Journal of Tropical Medicine, 2015.
[32] Hu J, Wang X, Ai T, et al. [Multicenter prospective epidemiological studies on Haemophilus influenzae infection among hospitalized children with lower respiratory tract infections][J]. Zhonghua Er Ke Za Zhi, 2016,54(2):119-125.
[33] 皮红泉, 吴乐天, 杨培文. 儿童呼吸道感染流感嗜血杆菌的临床特征与耐药性研究[J]. 中国卫生检验杂志, 2018,28(8).
[34] Wang Q, Liu C, Xu J, et al. Characteristics and Antibiotic Resistance of Haemophilus influenzae in Children with Lower Respiratory Tract Infection in Chengdu, China[J]. Jundishapur Journal of Microbiology, 2021,14(2).
[35] Fleming J A, Munthali A, Ngwira B, et al. Maternal immunization in Malawi: A mixed methods study of community perceptions, programmatic considerations, and recommendations for future planning[J]. Vaccine, 2019,37(32):4568-4575.
[36] Beijnen E M S, Odumade O A, Haren S D V. Molecular Determinants of the Early Life Immune Response to COVID-19 Infection and Immunization[J]. Vaccines, 2023,11(3):509.
[37] WANG L, SHAO C, FAN H, et al. Analysis of the pathogenic bacteria distribution and drug resistance of children′s respiratory tract infection during 2013 to 2016[J]. Laboratory Medicine and Clinic, 2018.
[38] ZHAO C, NI J, CAO B, et al. Comparative analysis of distribution and drug resistance of pathogenic Gram negative bacteria in lower respiratory tract infection of children and adult[J]. Journal of Tropical Medicine, 2015.
[39] Noor A, Aftab A, Aslam M, et al. Household heating fuels impact on Acute Respiratory Infection (ARI) symptoms among children in Punjab, Pakistan[J]. BMC Public Health, 2023,23(1):2380.
[40] Olwagen C P, Downs S L, Izu A, et al. Bacterial nasopharyngeal colonisation in children in South Africa before and during the COVID-19 pandemic: an observational study[J]. The Lancet Microbe, 2024,5(1):e34-e42.
[41] Ernest E V, Brazelton T B, Carhart E D, et al. Prevalence of Unique Pediatric Pathologies Encountered by Paramedic Students Across Age Groups[J]. Prehospital and Disaster Medicine, 2016,31(4):386-391.
[42] Zhang J, Yang T, Zou M, et al. The epidemiological features of respiratory tract infection using the multiplex panels detection during COVID-19 pandemic in Shandong province, China[J]. Scientific Reports, 2023,13(1):6319.
[43] Lin S, Wang H, Lin W, et al. Viral Pneumonia during the COVID-19 Pandemic, 2019–2021 Evoking Needs for SARS-CoV-2 and Additional Vaccinations[J]. Vaccines, 2023,11(5):905.
[44] Jakubu V, Vrbova I, Bitar I, et al. Evolution of mutations in the ftsI gene leading to amino acid substitutions in PBP3 in Haemophilus influenzae strains under the selective pressure of ampicillin and cefuroxime[J]. International Journal of Medical Microbiology, 2024,316:151626.
[45] Barbosa A R, Giufre M, Cerquetti M, et al. Polymorphism in ftsI gene and -lactam susceptibility in Portuguese Haemophilus influenzae strains: clonal dissemination of -lactamase-positive isolates with decreased susceptibility to amoxicillin/clavulanic acid[J]. Journal of Antimicrobial Chemotherapy, 2011,66(4):788-796.
[46] Honda H, Sato T, Shinagawa M, et al. Multiclonal Expansion and High Prevalence of β-Lactamase-Negative Haemophilus influenzae with High-Level Ampicillin Resistance in Japan and Susceptibility to Quinolones[J]. Antimicrobial Agents and Chemotherapy, 2018,62(9):e818-e851.
[47] Yan L, Lee M, Zhou W, et al. Antibiotic Resistance of Hemophilus influenzae Isolated from Children in Southwest China[J]. Clinical Laboratory, 2023,69.
[48] Manjie N, Caowei S, Juanjuan Z, et al. Clinical Characteristics,Serotypes and Drug Resistance of Invasive Haemophilus Influenzae Strains in Children[J]. Henan Medical Research, 2023.
[49] Takla A, Schönfeld V, Claus H, et al. Invasive Haemophilus influenzae Infections in Germany After the Introduction of Routine Childhood Immunization, 2001–2016[J]. Open Forum Infectious Diseases, 2020,7(10):a444.
[50] Su P, Huang A, Lai C, et al. Extensively drug-resistant Haemophilus influenzae – emergence, epidemiology, risk factors, and regimen[J]. BMC Microbiology, 2020,20(1):102.
[51] I. K K, Kochhar N, Ghosh A, et al. Perspectives on systematic generation of antibiotic resistance with special emphasis on modern antibiotics[J]. Total Environment Research Themes, 2023,8:100068.
[52] Xu W, Pan Z, Wu Y, et al. A database on the abundance of environmental antibiotic resistance genes[J]. Scientific Data, 2024,11(1):250.
[53] Sfeir M M. Haemophilus influenzae global epidemiology and antimicrobial susceptibility patterns including ampicillin and amoxicillin-clavulanate resistance based on β-lactamase production, 2013–2022[J]. BMC Infectious Diseases, 2025,25(1).
[54] 中华医学会儿科学分会感染学组, 中国儿童感染性疾病病原学及细菌耐药监测协作组, 中华儿科杂志编辑委员会. 儿童流感嗜血杆菌感染诊断及治疗专家建议[J]. 中华儿科杂志, 2019,57(9).
[55] Lâm T, Nürnberg S, Claus H, et al. Molecular epidemiology of imipenem resistance in invasive Haemophilus influenzae infections in Germany in 2016[J]. Journal of Antimicrobial Chemotherapy, 2020.
[56] Zhou M, Fu P, Fang C, et al. Antimicrobial resistance of Haemophilus influenzae isolates from pediatric hospitals in Mainland China: Report from the ISPED program, 2017–2019[J]. Indian Journal of Medical Microbiology, 2021,39(4):434-438.
相关文献推荐
- 节点文献
- 读者推荐
- 相关基金文献
- 关联作者
- 相关视频
- 批量下載
