
- DOI:
10.13738/j.cnki.acc.qklw60536
- 专辑:
科学Ⅰ辑;信息科技
- 专题:
信息、科学;综合科技
- 分类号:
G90;N92
摘要:目的:探讨梓醇对局灶永久性脑缺血大鼠神经功能恢复、神经血管新生的影响,并明确基质细胞衍生因子-1α/趋化因子CXC亚家族受体4(SDF-1α/CXCR4)信号通路在其中的介导作用。方法:选取180只健康成年雄性SD大鼠,采用改良Tamura法制备局灶永久性脑缺血模型,随机分为假手术组(Sham组)、模型组(Model组)和梓醇组(Catalpol组,5mg/kg)。梓醇组于术后24小时开始每日腹腔注射梓醇。术后1天、7天、14天、21天进行神经功能缺损评分以评价药效;通过明胶墨汁血管构筑观察缺血区血管新生;采用5-溴脱氧尿嘧啶核苷(BrdU)腹腔注射标记增殖细胞,免疫荧光双标技术(BrdU/神经元核抗原NeuN、BrdU/胶质纤维酸性蛋白GFAP、BrdU/分化簇31 CD31)检测神经细胞迁移分化与血管新生;蛋白质印迹法和酶联免疫吸附试验检测缺血周围皮质区SDF-1α、CXCR4、微管相关蛋白-2(MAP-2)、生长相关蛋白-43(GAP-43)的表达。结果:梓醇组大鼠神经功能评分在各时间点均显著优于模型组(P<0.05)。与模型组相比,梓醇组缺血周围区血管密度在7天、14天、21天时显著增加(P<0.05),且新生血管周围可见密集排列的BrdU/NeuN双阳性神经元。梓醇组7天时BrdU/NeuN阳性细胞数显著高于模型组(P<0.05)。梓醇组SDF-1α和CXCR4蛋白表达在7天达峰,各时间点均显著高于模型组(P<0.05),且其表达趋势与MAP-2、GAP-43及血管新生指标CD31的变化呈显著正相关(P<0.01)。结论:梓醇能显著促进脑缺血大鼠神经功能恢复,诱导梗死周围区血管新生与神经新生,其机制与上调SDF-1α/CXCR4信号通路,进而介导神经血管偶联效应密切相关。
关键词:梓醇;脑缺血;神经血管新生;基质细胞衍生因子-1α
脑卒中以其高发病率、高致残率和高死亡率成为全球重大公共卫生问题,其中缺血性脑卒中占比超过80%。目前,除超早期溶栓取栓外,针对神经功能恢复的有效治疗手段仍十分匮乏[1]。神经血管单元概念的提出,为脑缺血损伤修复研究提供了全新视角,强调神经发生与血管新生在时间和空间上的紧密偶联是功能重建的核心。梓醇作为中药地黄的主要活性单体,属滋阴补肾之品,课题组前期研究已证实其能促进脑缺血大鼠侧脑室脑下区神经干细胞增殖,但其能否协调梗死周围区的神经血管新生及其分子机制尚不明确[2-4]。SDF-1α/CXCR4轴是调控干细胞归巢、神经迁移和血管内皮细胞增殖的关键信号通路[5]。本研究提出假说:梓醇可能通过激活SDF-1α/CXCR4信号通路,诱导脑缺血后神经发生和血管新生的偶联,从而实现神经功能修复。本研究旨在系统阐明此机制,为中药治疗缺血性脑卒中提供新靶点与新理论。
1. 资料与方法
1.1 一般资料
选取健康成年雄性SPF级Sprague-Dawley大鼠180只,体质量(275±15)g。恒温(23±1)℃、相对湿度50%±5%环境下适应性饲养1周,自由进食饮水。采用随机数字表法分为3组:假手术组(Sham组)、模型组(Model组)和梓醇组(Catalpol组),每组60只。每组再按术后取材时间点(1天、7天、14天、21天)分为4个亚组,每亚组15只。
纳入标准:(1)首份神经功能评分为1-3分的大鼠,提示造模成功;(2)TTC染色确认存在恒定皮质梗死灶;(3)手术过程顺利,无大出血、感染等并发症。
排除标准:(1)术后24小时内死亡者;(2)神经功能缺损评分为0分或4分者;(3)出现蛛网膜下腔出血者;(4)取材时发现颅内占位性病变或畸形者。
1.2 方法
1.2.1 模型制备
采用改良Tamura法制作右侧局灶永久性脑缺血模型。大鼠经3%异氟烷吸入诱导麻醉,2%维持麻醉后,取右侧颞部入路,于手术显微镜下暴露颧弓,分离并切除部分颞肌,于鳞状骨与颧骨联合处前方钻开一约4mm直径骨窗,暴露右侧大脑中动脉。在嗅束至大脑下静脉之间,直视下用双极电凝器凝闭大脑中动脉主干及其至终末分支的全部皮层支,完全阻断血流。彻底止血后,庆大霉素冲洗,分层缝合创口。假手术组仅开颅暴露血管,不予电凝。术中维持肛温37.0±0.5℃。
1.2.2 给药方案
梓醇组于术后24小时起,每日上午9时腹腔注射梓醇(纯度>98%,分子式C₁₅H₂₂O₁₀),剂量5mg/kg,以无菌生理盐水配制为1mg/mL溶液。模型组和假手术组腹腔注射等体积无菌生理盐水,连续给药至处死前日。
1.2.3 5-溴脱氧尿嘧啶核苷标记
于处死动物前3天开始,每日腹腔注射BrdU(50mg/kg,Sigma,B5002),每8小时一次,共持续3天,以标签增殖细胞。
1.2.4 标本采集与处理
在术后1天、7天、14天、21天时间点,各组取相应亚组大鼠,深度麻醉后,每组5只用于明胶墨汁灌注,5只用于组织蛋白提取,5只用于组织病理学检查。蛋白及病理学检查的大鼠,经心灌注200mL生理盐水后断头取脑,于冰上迅速分离缺血周围皮质区,一部分置于液氮冻存备测,另一部分用4%多聚甲醛固定后行石蜡包埋,连续冠状切片,片厚5μm。
1.3 观察指标
1.3.1 神经功能缺损评估
由两名不了解分组的评估者,在术后各时间点采用5级评分法进行神经功能评估。0分:无神经缺损症状;1分:左侧前爪不能完全伸展;2分:行走时向左侧转圈;3分:行走时向左侧倾倒;4分:不能自发行走,意识水平降低。1-3分视为造模成功。
1.3.2 明胶墨汁血管构筑
术后1天、7天、14天、21天,每组随机取5只大鼠,深麻醉下开胸,经主动脉插管灌注清洗液(37℃,37kPa)冲出血液,随即在相同压力下灌注10%明胶墨汁混合液(37℃)150mL。结扎流出道,4℃冷藏4小时后取脑,体视显微镜下观察并拍摄缺血区表面及冠状剖面血管分布与墨汁充盈情况,以是否存在墨汁未充盈区、微血管密度及走行判断血管新生。
1.3.3 免疫荧光双标检测
各组取14天、21天切片,经抗原修复后,0.3% Triton X-100渗透,5% BSA封闭。分别孵育一抗:大鼠抗BrdU(1:200,Abcam, ab6326)和兔抗NeuN(神经元核抗原,1:500,Abcam, ab177487)、兔抗GFAP(胶质纤维酸性蛋白,1:1000,Dako, Z0334)、兔抗CD31(1:100,Abcam, ab182981)4℃过夜。次日避光孵育相应荧光二抗(Alexa Fluor 488抗大鼠,1:400;Alexa Fluor 594抗兔,1:400),DAPI染核,抗荧光淬灭封片剂封片。激光共聚焦显微镜下观察,每个样本选取梗死周围区5个不重叠高倍视野(×400),计数BrdU/NeuN、BrdU/GFAP、BrdU/CD31双阳性细胞,取平均值。
1.3.4 蛋白质印迹法检测
取冻存组织提取总蛋白,BCA法定量。每组30μg总蛋白经10% SDS-PAGE凝胶电泳分离,转印至PVDF膜。5%脱脂奶粉封闭2小时,TBST漂洗,加入一抗:兔抗SDF-1α(1:1000,abcam, ab9797)、兔抗CXCR4(1:1000,Abcam, ab124824)、兔抗MAP-2(1:2000,Proteintech, 17490-1-AP)、兔抗GAP-43(1:2000,Abcam, ab75810)、小鼠抗β-actin(1:5000,Sigma, A5441)4℃孵育过夜。次日TBST漂洗后,孵育HRP标记相应二抗(1:8000)1h。ECL发光显影,ImageJ软件分析条带灰度值,以目标蛋白与β-actin的比值表示相对表达量。
1.3.5 酶联免疫吸附试验检测
取100mg缺血周围皮层组织匀浆,4℃ 10000g离心15分钟取上清。按大鼠SDF-1α ELISA试剂盒(R&D Systems, DY350)说明书操作,酶标仪450nm波长测定吸光度值,根据标准曲线计算样品中SDF-1α蛋白含量,以pg/mg总蛋白表示。
1.4 统计学处理
采用SPSS 27.0统计软件进行分析。符合正态分布的计量资料以均数±标准差(x̄±s)表示。多组间比较采用单因素方差分析,若差异有统计学意义,进一步采用LSD-t检验进行两两比较;方差不齐时采用Dunnett’s T3检验。神经功能评分采用Kruskal-Wallis H秩和检验。相关性分析采用Pearson相关检验。以P<0.05为差异有统计学意义。
2. 结果
2.1 梓醇对脑缺血大鼠神经功能的影响
假手术组各时间点均无神经功能缺损。模型组和梓醇组大鼠术后1天均出现明显神经功能缺损,评分比较差异无统计学意义(P>0.05),表明初始损伤程度一致。随着时间的推移,两组大鼠神经功能均有所恢复。自术后7天起,梓醇组神经功能评分均显著低于同时间点模型组(P<0.05),表现为行走倾倒与旋转行为明显减少。至21天,梓醇组评分降至0.87±0.34分,而模型组为1.89±0.41分,差异有统计学意义(H=18.475,P<0.05)。详见表1。
表1 各组大鼠术后不同时间点神经功能评分比较(分,x̄±s)
组别 | 1天 | 7天 | 14天 | 21天 |
假手术组 | 0.00±0.00 | 0.00±0.00 | 0.00±0.00 | 0.00±0.00 |
模型组 | 2.91±0.32 | 2.48±0.37 | 2.13±0.45 | 1.89±0.41 |
梓醇组 | 2.87±0.35 | 1.64±0.42* | 1.28±0.31* | 0.87±0.34* |
H值 | 0.424 | 14.571 | 16.326 | 18.475 |
P值 | 0.809 | <0.05 | <0.05 | <0.05 |
注:与模型组同一时间点相比,*P<0.05。
2.2 梓醇对缺血周围区血管新生的影响及解剖联系
明胶墨汁血管构筑显示,假手术组皮层血管网清晰完整。模型组1天时缺血中心区无墨汁充盈,呈苍白梗死灶,其周围血管稀疏、断裂。模型组7天时周围区可见少量纤细、不规则新生血管芽,14-21天时有所增多但排列紊乱[6]。梓醇组1天时表现与模型组相似,但在7天时,缺血周围区即出现密集的墨汁充盈微血管网,新生血管管径较模型组粗,呈活跃的发芽和网络化形态。14天和21天时,此区域的血管密度和网络复杂性均明显优于模型组。图像定量分析显示,梓醇组各时间点(7天、14天、21天)血管分支点数均显著高于模型组(P<0.05),提示梓醇显著促进并加速了缺血后的血管新生进程。进一步的BrdU/CD31免疫荧光双标显示,新生血管区域紧密分布着BrdU阳性的增殖细胞,在梓醇组的14天切片中,甚至可在较大微血管管壁附近观察到BrdU/NeuN双阳性的新生神经元沿着血管走行迁移排列的典型解剖学偶联现象,此现象在模型组中极少见。模型组14天时BrdU/CD31双阳性细胞为8.32±1.58个/视野,梓醇组高达17.79±2.10个/视野(t=8.713,P<0.05)。
2.3 梓醇对神经细胞增殖、迁移与分化的作用
BrdU免疫荧光双标结果显示,假手术组皮层NeuN阳性成熟神经元排列整齐,几乎未见BrdU/NeuN共表达。模型组及梓醇组在14天、21天时,于梗死灶边缘区可观察到散在的BrdU/NeuN双阳性细胞,表明有新生的神经元迁移分化至此[7]。梓醇组的作用更为显著,在14天时,BrdU/NeuN阳性细胞数达28.17±4.63个/高倍视野,较模型组的15.50±3.21个/视野增加了近一倍(t=10.964,P<0.05)。进入21天,模型组新生神经元数量稍有回落至19.33±2.94个/视野,而梓醇组仍有38.91±5.11个/视野的高表达(t=9.016,P<0.05),显示出梓醇不仅促进增殖,更有利于新生神经元的长期存活。检测BrdU/GFAP双阳性细胞代表星形胶质细胞增生,梓醇组14天时为18.54±2.77个/视野,显著低于模型组的29.87±4.05个/视野(t=5.776,P<0.05),提示梓醇抑制了过度的胶质瘢痕形成,优化了神经再生的微环境。详见表2。
表2 各组大鼠14天、21天脑缺血周围区BrdU阳性细胞分化比较(x̄±s)
指标/时间点 | 假手术组 | 模型组 | 梓醇组 | t值(模型vs梓醇) | P值 |
14天 | |||||
BrdU/NeuN | 0.80±0.21 | 15.50±3.21 | 28.17±4.63 | 10.964 | <0.05 |
BrdU/GFAP | 1.20±0.34 | 29.87±4.05 | 18.54±2.77 | 5.776 | <0.05 |
BrdU/CD31 | 0.60±0.15 | 8.32±1.58 | 17.79±2.10 | 8.713 | <0.05 |
21天 | |||||
BrdU/NeuN | 0.40±0.11 | 19.33±2.94 | 38.91±5.11 | 9.016 | <0.05 |
BrdU/GFAP | 0.90±0.25 | 25.44±3.62 | 15.45±2.38 | 5.319 | <0.05 |
BrdU/CD31 | 0.50±0.13 | 9.15±1.73 | 16.32±2.42 | 7.182 | <0.05 |
2.4 梓醇对SDF-1α/CXCR4信号通路及神经血管蛋白表达的影响
蛋白质印迹法检测结果显示,与假手术组低水平表达相比,模型组SDF-1α及其受体CXCR4蛋白在缺血后表达显著上调,于7天达到峰值,14天、21天缓慢下降,呈现一定的时间规律[8]。梓醇干预后,SDF-1α和CXCR4蛋白的相对表达量在各时间点均显著高于模型组(P<0.05),尤其在7天峰值时,梓醇组SDF-1α/β-actin比值为2.87±0.31,模型组为1.91±0.22(t=5.873,P<0.05);梓醇组CXCR4/β-actin比值为3.12±0.38,模型组为2.03±0.25(t=6.013,P<0.05)。
进一步检测反映神经元存活与轴突再生的蛋白MAP-2和GAP-43,结果显示其表达趋势与SDF-1α/CXCR4轴高度一致。梓醇组在7天、14天、21天三个时间点的MAP-2和GAP-43表达水平均显著高于模型组(P<0.05)。尤其在14天时,梓醇组MAP-2/β-actin(1.54±0.14)和GAP-43/β-actin(1.87±0.19)表达水平均显著高于模型组(1.02±0.12、1.11±0.15),t值分别为5.127和6.327,P值均小于0.05。ELISA检测组织匀浆SDF-1α蛋白定量结果进一步验证了WB趋势,梓醇组7天时含量高达892.45±67.33 pg/mg,而模型组为551.38±52.17 pg/mg(t=9.446,P<0.05)。
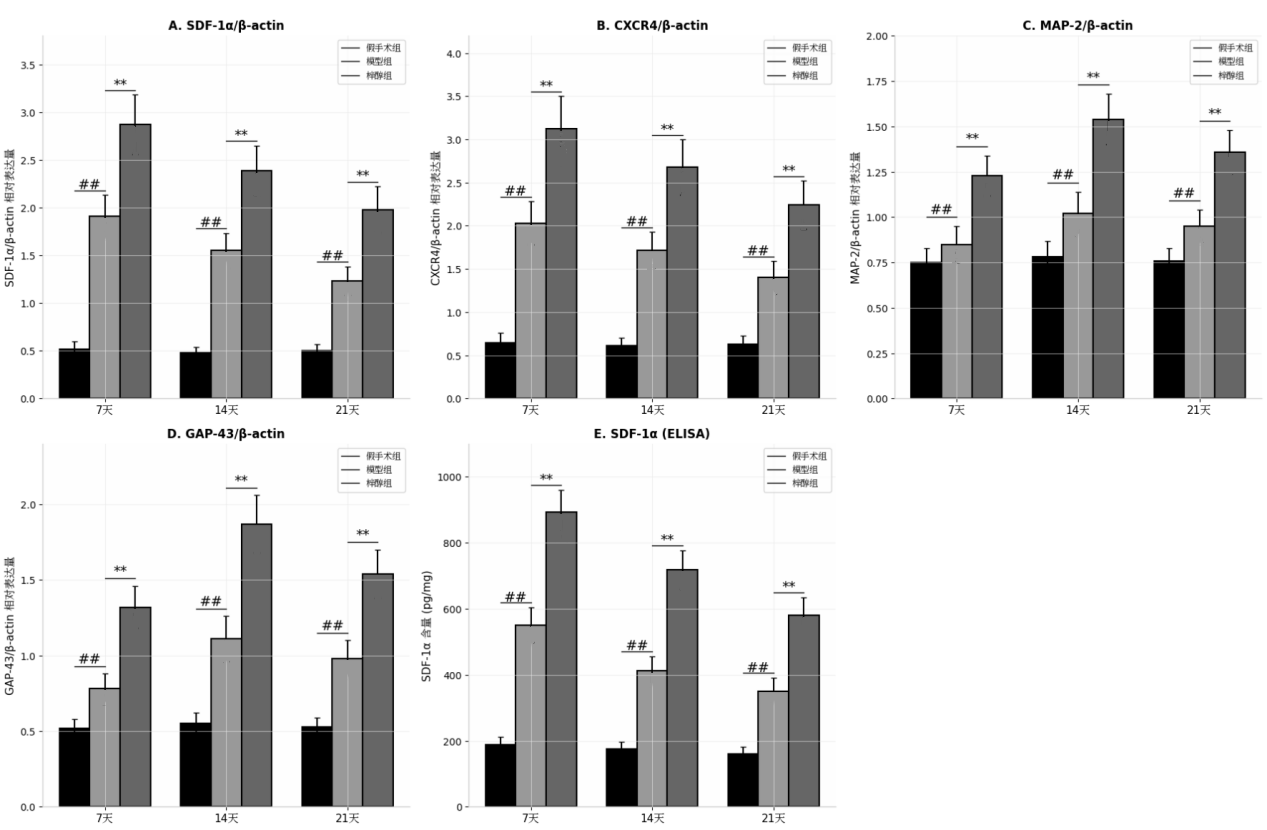
图1 各组大鼠缺血周围皮质区SDF-1α、CXCR4蛋白相对表达量与SDF-1α含量比较
3. 讨论
本研究通过稳定的局灶皮层脑缺血模型,系统观察了梓醇5mg/kg干预下的脑修复过程[9-13]。我们首先通过行为学证实了梓醇确切的神经功能恢复疗效,这为后续的结构与机制研究奠定了功能学基础[14]。本研究的技术关键是成功运用了明胶墨汁血管构筑与BrdU追踪技术,在解剖结构上直观地捕捉到了血管新生与神经新生在空间上的紧密偶联[15]。观察到梓醇组新生的BrdU/NeuN阳性神经元沿CD31阳性的新生血管链迁移、排列的现象,这是神经血管偶联的经典结构证据[16]。深入探究其分子机制,本研究的核心发现是梓醇显著上调了SDF-1α/CXCR4这一关键信号通路[17]。该通路蛋白表达的时程变化(7天达峰)与之前观察到的体内细胞增殖高峰完美吻合,且其表达强度与最终分化成熟的神经元及血管网络密度存在强正相关[18]。SDF-1α作为一种强大的趋化因子,其上调可同时吸引表达CXCR4受体的神经干/祖细胞和血管内皮祖细胞向损伤区归巢和募集,这完美解释了为何我们既能观察到血管新生加剧,又能看到神经新生增强的同步现象[19]。因此,梓醇通过激活SDF-1α/CXCR4信号轴,成为协调脑缺血后神经血管修复“偶联交响曲”的指挥家[20。
结论
综上所述,梓醇能够显著改善局灶永久性脑缺血大鼠的神经功能缺损。其机制在于通过上调缺血周围皮质区SDF-1α及其受体CXCR4的蛋白水平,有效诱导了以BrdU/NeuN阳性细胞增多为标志的神经新生和以CD31阳性微血管密度增加为标志的血管新生,并在结构上展现出高度的神经血管偶联效应。本研究为梓醇作为促卒中后功能修复的新型药物开发提供了扎实的实验依据。
参考文献
[1]王 园,薛莉君,陆 丹,等.梓醇联合CXCR4激动剂促进脑缺血后神经血管重塑的疗效与 机制优化[J].医学论坛, 2025(9).
[2]张美凤.梓醇介导SDF-1α/CXCR4调控脑缺血大鼠神经干细胞和局部微环境促进神经新生与迁移的机制研究[D].西南大学,2022.
[3]张佳乐,周霞,孙立平,et al.基于Ang-1/Tie-2信号通路探讨生地黄梓醇对缺血性脑卒中大鼠促血管生成与神经功能的重塑效应[J].西部中医药, 2025, 38(9):16-21.
[4]宋雷,毛思雨,侯佳睿,等.梓醇-芍药苷通过抑制miR-124促进神经干细胞增殖与迁移治疗围绝经期抑郁症的机制研究[J].中国比较医学杂志, 2025, 35(11):11-23.
[5]闫凤丽,黄世敬.梓醇对神经血管单元保护作用机制研究进展[J].辽宁中医药大学学报, 2023, 24(02):24-29.
[6] Sun S , Xu Y , Yu N ,et al.Catalpol Alleviates Ischemic Stroke Through Promoting Angiogenesis and Facilitating Proliferation and Differentiation of Neural Stem Cells via the VEGF-A/KDR Pathway[J].Molecular Neurobiology, 2023, 60(11).
[7]廖雪霞,彭鑫,黄婷婷,等.梓醇调节TLR4/NF-κB信号通路对急性乙型肝炎大鼠肝损伤的保护作用研究[J].中国免疫学杂志, 2025, 41(03):545-550.
[8]王惠清,蒋鸿晶,张洋.梓醇调节CCL2-CCR2轴对子宫内膜癌细胞增殖,迁移和免疫逃逸的影响[J].中国免疫学杂志, 2025, 41(12):2872-2878.
[9]王琳,左振魁,任兰鑫,等.梓醇调节FAK/MEK/ERK信号通路对结肠癌细胞迁移,侵袭和顺铂敏感性的影响[J].中药材, 2025, 48(2):473-478.
[10]田辉,付桃利,王丽梅,等.基于SphK1/S1P信号通路探讨梓醇对肺纤维化大鼠的保护作用[J].中国老年学杂志, 2025(18)12-18.
[11] Sun W X , Gao Y Y , Cao Y ,et al.Catalpol Prevents Glomerular Angiogenesis Induced by Advanced Glycation End Products via Inhibiting Galectin-3[J].Current Medical Science, 2023, 43(4):11.
[12]邓楚珺,孟胜喜,杨若瑜,等.梓醇-川芎嗪方对SAMP8小鼠认知功能的改善作用及机制[J].中西医结合心脑血管病杂志, 2024, 22(21):3907-3912.
[13]林立志,尹晓荣,申程,等.梓醇对缺血性心脏病保护机制的研究进展[J].中国心血管病研究, 2023, 21(3):219-223.
[14] Laurindo L F ,Rodrigues, Victória Dogani, Guiguer E L ,et al.Catalpol: An Iridoid Glycoside With Potential in Combating Cancer Development and Progression—A Comprehensive Review[J].Phytotherapy Research, 2025, 39(10).
[15]李海莎,彭慧如,罗辉,等.梓醇调节RIP1/RIP3/MLKL信号通路对急性心肌梗死大鼠坏死性凋亡的影响[J].中国临床药理学杂志, 2024, 40(14):2063-2067.
[16]黄睿,卓惠勇,郑佑相,等.梓醇对大鼠急性脊髓损伤的神经保护作用及其机制研究[J].海峡药学, 2023, 35(3):1-5.
[17]闫凤丽,黄世敬.梓醇对神经血管单元保护作用机制研究进展[J].辽宁中医药大学学报, 2023, 24(05):10-16.[16]
18 Ni J R , Zhang Q H , Deng J L ,et al.Promotion Effect of Catalpol on Angiogenesis and Potential Mechanisms: A Research Based on Network Pharmacology[J].Chemical Biology & Drug Design, 2024, 104(2):10.
[19]李立,邓力,赵冲宇,等.梓醇调节HIF-1α/VEGF信号通路对股骨骨不连大鼠血管生成和骨愈合的影响[J].中国老年学杂志, 2025(11).
[20] Xinyi M , Yi L , Miaojie H D L .Effects of Catalpol from Rehmannia glutinosa Extract on Skin Flaps[J].Plastic and reconstructive surgery, 2024, 153(2):401-410.
基金项日:重庆化工职业学院校级课题 项目编号:HZY2024-KJ10
相关文献推荐
- 节点文献
- 读者推荐
- 相关基金文献
- 关联作者
- 相关视频
- 批量下載
