
- DOI:
10.13738/j.cnki.acc.qklw60536
- 专辑:
科学Ⅰ辑;信息科技
- 专题:
信息、科学;综合科技
- 分类号:
G90;N92
【摘要】 目的 分析2013—2017年柳州市乙型流感病毒Yamagata系HA基因抗原表位突变及进化特征,探讨其分子流行规律。方法 选取该期间保存的乙型流感Yamagata系毒株,提取核酸,扩增HA基因片段,测序并进行变异分析。结果 24株毒株HA基因系统进化树显示,2013—2017年乙型流感病毒共引起3个主要流行峰,流行季节为冬春季和夏季。血凝素蛋白氨基酸序列存在点突变,但较少分布于抗原表位,未分布于受体结合位点。结论 2013—2017年柳州市流行的乙型流感病毒,当年WHO推荐疫苗尚具保护作用。
【关键词】乙型流感病毒;血凝素基因;基因变异;进化树
1940年Francis首次分离出乙型流感病毒。该病毒进化较慢,分为Yamagata和Victoria两系,两系在HA1区有32~40个氨基酸差异,无交叉保护作用,流行转换时可致暴发[1]。乙型流感虽不引起大流行,但可致局部暴发,2004年以来占流感病毒的1%~56%,引起1%~52%的流感相关儿童死亡。乙型流感病毒为有包膜的单股负链RNA病毒,结构分三层,各节段末端序列高度保守形成锅柄样结构[2]。HA是抗原变异的分子基础,测序与分析HA基因是研究抗原性的主要手段。柳州市2009年纳入流感监测,但缺乏乙型流感基线资料,2013—2017年乙型流感活动增强,尤其2017年出现暴发,故对该时期病毒进行抗原性与基因特性研究,为流感监测与疫苗筛选提供依据[3]。
1 对象与方法
1.1 毒株来源 本研究收集 2013 年 1 月至 2017 年 12 月间柳州市哨点医院人民医院、广西科技大学第二附属医院、柳州市铁路中心医院以及突发流感疫情病例的呼吸道标本。经过犬肾细胞(Madin-Darby canine kidney ,MDCK)获得流感毒株,经过血凝实验和血凝抑制实验复核确认后于-80℃保存待用。
1.2 病毒RNA的提取 将标本咽拭子用核酸提取试剂盒(西安天隆生物科技有限公司)提取标本RNA ,操作步骤按试剂盒说明书方法。RNA溶解于50μl RNase- free ddH2O-80℃保存待用。
1.3 流感病毒核酸检测及分型保存好的核酸用通用甲型/乙型,乙型Victoria和乙型Yamagata流感病毒分型检测试剂盒(江苏硕世生物有限公司)按照说明书进行荧光RT-PCR检测,扩增曲线为S型曲线且Ct≤35.3时,判断为阳性标本。
1.4 基因测序样本选择 从保存的毒株中按照不同时间、不同城区挑选出一定数量在 MDCK 细胞分离鉴定再进行核苷酸序列的测定,其中 2013 年 2 株,2014年 4 株,2015 年 6 株,2016 年 5 株,2017 年 9 株。
2 结果
2.1 流感病毒分子分型与流行特征 在 2015 年~2017 年间总共检测5049 例病例, 449 例为乙型流感病毒阳性(8.89%)。图 1 为柳州市 2015 年~2017 年期间流感病毒流行特征。
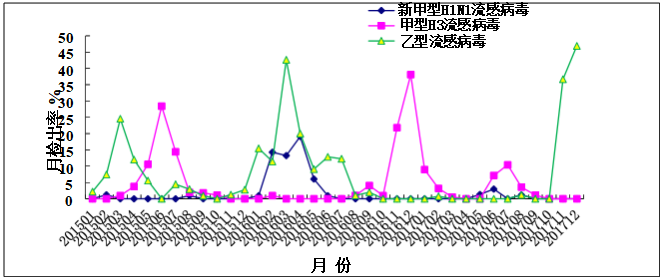
图 1 2015~2017 年柳州市流感病毒检出率分月图
2.2 HA 基因进化树 选择 2013 年~2017 年间柳州市 24 个乙型流感病毒Yamagata系和 2 个 Vitoria 系的 HA 基因全长序列 WHO 推荐的疫苗株进行比对,构建进化树分析发现(如图 2):
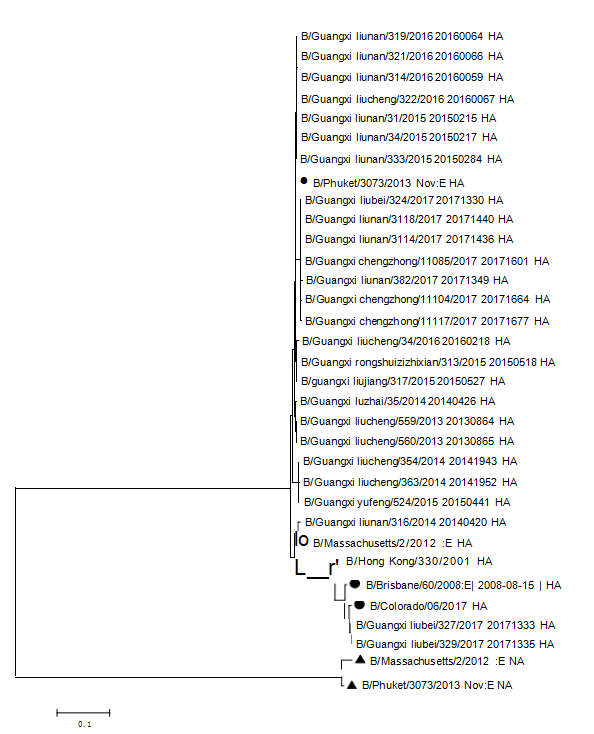
图 2 2013~2017 年流行乙型流感病毒 Yamagata 系的 HA 基因全长序列进行系统
进化树分析
注:图 2 标注有“●”“▲ ”符号的为疫苗株。
2.3 遗传进化分析 将24株乙型流感毒株的HA基因与疫苗株B/Massachusetts/2/2012和B/Phuket/3073/2013进行比对。结果见表1
表 1 2013-2017 年柳州市 Yamagata 系流行毒株与疫苗株比对后氨基酸变异位点
2013 | 2014 | 2015 | 2016 | 2017 | |
1 | R230G | G121S | R230G | S261P | H110Y |
2 | L550P | D151Y | R264Q | A140T | |
3 | K157E | R185W | |||
4 | R180C | P195S | |||
5 | R210G | P227S | |||
6 | D262N | N254D | |||
7 | G300R | A256T | |||
8 | T304A | D285G | |||
9 | R334G | E423K | |||
10 | I356T | N509D | |||
11 | S388G | I555T | |||
12 | S514P | ||||
13 | R518G | ||||
14 | R522W | ||||
15 | P550L |
注:标红为抗原表位位点上的氨基酸突变,标蓝为受体结合位点 RBS。
3 结论
热带和亚热带地区全年均可发生流感流行,温带地区流感多发生于冬季[1]。流感抗原变异是其不断流行的重要原因,乙型流感病毒HA和NA决定病毒抗原性,是抗原变异的主要因素。抗原漂移源于HA上核苷酸小变异的累积,但只有部分突变在自然选择下固定并具流行病学意义。
乙型流感病毒HA1上有4个抗原表位,分别为120环、150环、160环和190螺旋,这些位点的氨基酸突变常引起病毒抗原性改变。当抗原决定簇上出现4个以上位点氨基酸替换且涉及2至3个抗原决定簇时,需更换疫苗株[2],应及时更新疫苗株以保证防控效果。
本研究分析发现,2013年、2015年和2016年的Yamagata系毒株突变位点为1至2个且未发生在抗原决定簇上,疫苗株尚能保护人群;2014年和2017年毒株有10个以上氨基酸位点发生突变,其中2014年G121S和2017年P195S位于抗原决定簇,但未能引起抗原漂移,疫苗株保护作用尚可。
流感病毒宿主特异性受HA蛋白与唾液酸受体结合特性的影响。唾液酸为B型流感病毒细胞表面受体[3],HA蛋白经高度糖基化后与肺表面胶质凝集素结合,解释了B型流感病毒相对局限地感染上呼吸道[4]。唾液酸受体分为α-2,3型和α-2,6型,α-2,6型主要分布于人上呼吸道,α-2,3型主要分布于下呼吸道。B型流感病毒均主要感染上呼吸道,HA蛋白与受体的结合能力影响病毒宿主范围。
乙型流感病毒受体结合位点位于HA1上,由190螺旋、240环、140环及四个残基构成,这些氨基酸改变直接影响HA蛋白的受体结合特性。本研究发现毒株与同期疫苗株之间在受体结合位点上出现变异位点。
4 讨论 本研究收集2013—2017年柳州市哨点医院流感样病例及复核确认的流感毒株,测定部分乙型流感毒株HA基因序列,分析流感活动水平、流行情况及分子变异特征。我市流感流行高峰在冬春和夏季,乙型流感发病高峰在冬春季,城区阳性检出率高于县份,流行株包括Yamagata和Victoria两个种系,四价流感疫苗尚具保护作用。病毒在进化中会发生基因突变与重组,导致致病性改变和再次流行,需通过疫苗接种预防,但因病毒抗原易变,疫苗成分需不断调整。结合宏观监测与分子水平研究,对掌握流感流行情况、预测活动水平和制备疫苗具有重要意义。
参考文献:
[1]Francis Jr T. A new type of virus from epidemic influenza[J]. Science, 1940, 92(2392): 405-408.
[2]李湛,何牧,王彦波,等. 2017—2024年北京东北郊区1150起呼吸道暴发疫情中流感病原学分布及乙型流感病毒分子进化分析[J].华南预防医学,2025,51(11):1220-1226.
[3]吴萍,庄丽,郑菊,等.贵州省2022—2024年乙型流感病毒流行特征和血凝素基因变异分析[J].中国热带医学, 2026, 26(1):80-87.
[4]何川,王晨旭,王志越.2023年北京市门头沟区乙型B/Victoria系流感疫情病毒血凝素基因特征分析[J].疾病预防控制通报, 2025(4):5-8.
相关文献推荐
- 节点文献
- 读者推荐
- 相关基金文献
- 关联作者
- 相关视频
- 批量下載
