
- DOI:
10.13738/j.cnki.acc.qklw60536
- 专辑:
科学Ⅰ辑;信息科技
- 专题:
信息、科学;综合科技
- 分类号:
G90;N92
摘要:结核病仍是全球重大健康威胁。结核分枝杆菌在宿主体内以生物膜形式存在,其结构中的细菌对抗生素和宿主免疫系统的清除具有高度抗性。生物膜中的细菌通过聚集形成索状结构或菌膜,阻碍巨噬细胞吞噬,并利用细胞外DNA加固生物膜。分枝菌酸是分枝杆菌细胞壁的核心成分,其疏水性可降低抗生素渗透性,并直接促进生物膜形成。合成途径依赖两类脂肪酸合成酶(FASⅠ和FASⅡ),其中FASⅡ的基因簇是分枝菌酸合成的关键。细胞外自由的分枝菌酸是生物膜形成的重要信号分子。多聚磷酸盐的缺失会抑制生物膜形成,并降低细菌对异烟肼的抗性,推测其通过影响分枝菌酸代谢调控生物膜成熟。未来的研究揭示分枝菌酸合成与生物膜形成的关联,将为开发靶向生物膜的抗结核药物提供新思路。
关键词:多聚磷酸盐;脂肪酸;生物膜;脂肪酸代谢
结核病仍然是人类健康的主要威胁,在2024年导致140万人死亡和104万人感染,其中48万是耐多药分枝杆菌感染病例。多重耐药和广泛耐药结核分枝杆菌的出现不仅显示出当前结核病控制策略的局限性,而且也预示结核病将会带来更大范围的流行。因此,迫切需要开发一个短期抗结核药物的联合治疗方案,以更有效的方式根除药物抗性的结核分枝杆菌。然而,实现这个目标的最大障碍是缺乏对分枝杆菌体内药物耐受因子的认识,正是这些因子导致目前的联合治疗策略需要6-12个月的治疗时间。
自从发现结核分枝杆菌感染巨噬细胞并能够在其中存活的现象以来,关于结核分枝杆菌如何逃避细胞内的杀伤机制的研究非常多。然而,结核分枝杆菌是兼性细胞内寄生微生物。关于细胞外的结核分枝杆菌在活动性结核病的致病机制或临床上的耐药机制方面的认识知之甚少。细胞外结核分枝杆菌不仅与感染有关,而且还涉及组织的坏死、空洞的形成,以及持留细菌的复发[1, 2]。细胞外的结核分枝杆菌主要以生物膜的形式存在,然而目前对结核分枝杆菌生物膜形成的机制的研究非常少。
一、对分枝杆菌生物膜已有的认识
分枝杆菌具有形成生物膜的特征,比如在无表面活性剂的液体培养基中,结核分枝杆菌能够聚集成团或形成索状,在某些条件下,在气液交界处形成菌膜[3],而且这种结构也可能在人肺部气液界面形成[4]。研究发现玫瑰红染料能够将坏死组织周围染色,其被染色的物质就是结核分枝杆菌来源的分枝菌酸。分枝菌酸与药物耐受的细菌存在于共同的区域,即存在于坏死组织周围,这表明分枝杆菌能够在宿主体内以生物膜方式生长。
生物膜中的分枝杆菌在遗传和生理特征上不同于浮游生长的分枝杆菌,生物膜是药物耐受的,并藏有能逃避高浓度抗结核抗生素的持留菌[5]。结核分枝杆菌的感染具有高度持留性,并表现出对抗生素的抗性和对宿主免疫系统的调节功能。
此外,由于细胞外的分枝杆菌聚集成团或形成索状,而不能被巨噬细胞吞噬。因此,巨噬细胞会形成细胞外陷阱(extracellular traps)以杀死细胞外的生物膜形式的分枝杆菌。巨噬细胞形成的细胞外陷阱包括双链DNA和组蛋白等物质[6],然而,分枝杆菌会利用细胞外的DNA形成生物膜。
二、分枝菌酸的生物合成及其与生物膜的关系
分枝菌酸(mycolic acids)是α-烷基-β-酮脂酰基-长链脂肪酸,是分枝杆菌细胞壁主要和独特的脂肪酸,具有非常重要的功能包括对疏水抗生素的低通透性,促进生物膜形成[7]和细菌的持留性[8]。分枝菌酸以三种形成存在于分枝杆菌中:(1)通过共价方式连接到细胞壁的多糖上;(2)与各种碳水化合物分子形成脂(最常见的是海藻糖单-和-二分枝菌酸);(3)自由的分枝菌酸。由于分枝菌酸对细菌的生存能力和毒性非常重要,有大量的研究致力于鉴定和分析其代谢酶[9, 10]。因此,关于分枝菌酸的生物合成途径已经了解的相当清楚[11](图1)。分枝菌酸的合成需要两类脂肪酸合成酶(fatty acid synthase,FAS),它们分别是:Ⅰ型脂肪酸合成酶(FASⅠ)和Ⅱ型脂肪酸合成酶(FASⅡ)。FASⅠ通过乙酰辅酶A从头合成两个产物: C24-26酰基辅酶A 和C16-18酰基辅酶A。C24-26酰基辅酶A合成分枝菌酸的α-链,而C16-18酰基辅酶A随后被FASⅡ继续延长的,合成分枝菌酸的β-链。然后,各种酶对β-链进行进一步修饰[11]。合成的分枝菌酸随后被细胞膜上的转移蛋白Mmpl3以海藻糖单分枝菌酸形式转运到细胞外。编码FASⅡ合成酶的基因位于三个独立的转录单元,它们分别是: fabD-acpM-kasA-kasB-accD6、 mabA-inhA和hadA-hadB-hadC。
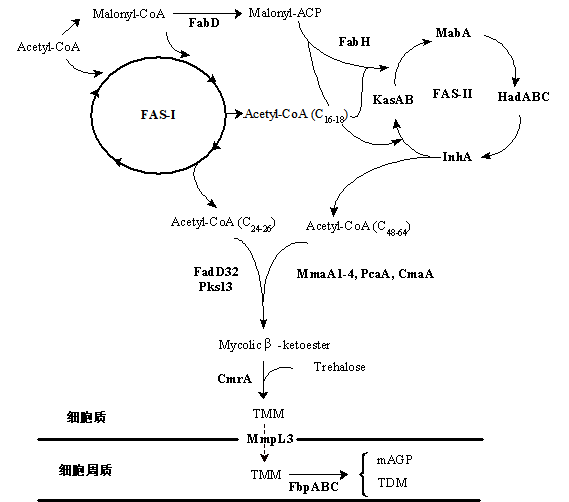
图1. 分枝菌酸生物合成和转运示意图。
涉及合成和转运的酶以黑体表示。虚线表示跨膜转运。acetyl-CoA:乙酰辅酶A;malonyl-CoA:丙酰辅酶A;malonyl-ACP:丙酰酰基载体蛋白;acety-CoA(C16-18):C16-18酰基辅酶A;acety-CoA(C24-26):C24-26酰基辅酶A;acety-CoA(C48-64):C48-64酰基辅酶A;mycolic β-ketoester:分枝菌酸β酮脂;trehalose:海藻糖;TMM:海藻糖单分枝菌酸(trehalose-mono-mycolate);mAGP:分枝菌酸-阿拉伯半乳聚糖-肽聚糖(mycolyl-arabinogalactan-peptidoglycan)。
最近的研究结果表明细胞外自由的分枝菌酸与结核分枝杆菌的生物膜形成相关[5]。耻垢分枝杆菌生物膜中自由的分枝菌酸来自于海藻糖二分枝菌酸(索状因子)裂解所产生[12]。影响分枝菌酸生物合成会导致生物膜形成受损[13]。比如: GroEL1调节了生物膜形成过程中分枝菌酸的合成,并与KasA特异性结合[13]。失活groEL1不影响耻垢分枝杆菌的浮游生长,但是抑制其生物膜的成熟。
异烟肼(isoniazide,INH)是最有效的抗结核药物,其主要作用靶点是InhA[14, 15]。INH处理结核分枝杆菌导致二十六烷酸(hexacosanoic acid)的积累;耻垢分枝杆菌的InhA蛋白失活抑制分枝菌酸生物合成和导致十六烷酸水平下降,但是伴随二十四烷酸增加。同样,用INH处理BCG导致分枝菌酸生物合成抑制,十六烷酸水平下降和二十六烷酸增加。这些结果表明INH处理导致细胞内脂肪酸代谢改变。
虽然关于分枝菌酸的生物合成过程了解已相当清楚,但是关于分枝菌酸生物合成相关基因表达调控的认识缺乏。已经鉴定的直接调节其生物合成基因的转录调节子非常少。FasR激活fasⅠ的表达[16],而MabR[17] 抑制fasⅡ(fabD-acpM-kasA-kasB-accD6)基因簇和fasⅠ的表达、FadR[18]抑制fasⅡ的表达。然而,环境信号如何触发这些调节途径并不清楚。
三、多聚磷酸盐影响分枝杆菌的生物膜形成
多聚磷酸盐控制了分枝杆菌的各种生理过程,包括细菌的生物膜形成[3, 20]。非常有趣的是多聚磷酸盐影响分枝杆菌对异烟肼的敏感性,如多聚磷酸盐的缺失导致分枝杆菌对INH抗性降低8倍[21],而多聚磷酸盐的聚集导致分枝杆菌对INH抗性增高4倍[22]。我们之前发表的文章表明多聚磷酸盐的缺失影响耻垢分枝杆菌生物膜形成能力,其原因与细菌表面脂质成分的改变相关[3]。因此,我们推测,多聚磷酸盐或许影响了分枝菌酸的代谢从而影响了分枝杆菌生物膜的形成。
四、展望
我们报道多聚磷酸盐缺失导致耻垢分枝杆菌生物膜形成能力受损,其原因可能是影响细胞表面脂肪酸的组成。我们推测多聚磷酸盐缺失影响到分枝菌酸生物合成FASⅡ系统中的某个途径,导致其合成代谢的改变。未来的研究将揭示多聚磷酸盐如何影响分枝菌酸的生物合成,从而影响分枝杆菌的生物膜形成,为研发防控生物膜参与的耐药和持留菌措施提供基础。
参考文献
[1] Orme IM. A new unifying theory of the pathogenesis of tuberculosis[J]. Tuberculosis (Edinb), 2014, 94(1):8–14.
[2] Basaraba RJ and Ojha AK. Mycobacterial Biofilms: Revisiting Tuberculosis Bacilli in Extracellular Necrotizing Lesions[J]. Microbiol Spectr, 2017, 5(3).
[3] Hunter RL, Olsen M, Jagannath C, et al. Trehalose 6,6'-dimycolate and lipid in the pathogenesis of caseating granulomas of tuberculosis in mice[J]. Am J Pathol, 2006, 168(4):1249–1261.
[4] Hunter RL, Olsen MR, Jagannath C, et al. Multiple roles of cord factor in the pathogenesis of primary, secondary, and cavitary tuberculosis, including a revised description of the pathology of secondary disease[J]. Ann Clin Lab Sci, 2006, 36(4):371–386.
[5] Ojha AK, Baughn AD, Sambandan D, et al. Growth of Mycobacterium tuberculosis biofilms containing free mycolic acids and harbouring drug-tolerant bacteria[J]. Mol Microbiol, 2008, 69(1):164–174.
[6] Kalsum S, Braian C, Koeken V, et al. The Cording Phenotype of Mycobacterium tuberculosis Induces the Formation of Extracellular Traps in Human Macrophages[J]. Front Cell Infect Microbiol, 2017, 7:278.
[7] Stewart PS, Franklin MJ, Williamson KS, et al. Contribution of stress responses to antibiotic tolerance in Pseudomonas aeruginosa biofilms[J]. Antimicrob Agents Chemother, 2015, 59(7):3838–3847.
[8] Bhatt A, Fujiwara N, Bhatt K, et al. Deletion of kasB in Mycobacterium tuberculosis causes loss of acid-fastness and subclinical latent tuberculosis in immunocompetent mice[J]. Proc Natl Acad Sci U S A, 2007, 104(12):5157–5162.
[9] Daffe M, Crick DC. and Jackson M. Genetics of Capsular Polysaccharides and Cell Envelope (Glyco)lipids[J]. Microbiol Spectr, 2014, 2(4):MGM2–0021–2013.
[10] Jackson M, McNeil MR. and Brennan PJ. Progress in targeting cell envelope biogenesis in Mycobacterium tuberculosis[J]. Future Microbiol, 2013, 8(7):855–875.
[11] Marrakchi H, Laneelle MA. and Daffe M. Mycolic acids: structures, biosynthesis, and beyond[J]. Chem Biol, 2014, 21(1):67–85.
[12] Ojha AK, Trivelli X, Guerardel Y, et al. Enzymatic hydrolysis of trehalose dimycolate releases free mycolic acids during mycobacterial growth in biofilms[J]. J Biol Chem, 2010, 285(23):17380–17389.
[13] Ojha A, Anand M, Bhatt A, et al. GroEL1: a dedicated chaperone involved in mycolic acid biosynthesis during biofilm formation in mycobacteria[J]. Cell, 2005, 123(5):861–873.
[14] Vilcheze C, Wang F, Arai M, et al. Transfer of a point mutation in Mycobacterium tuberculosis inhA resolves the target of isoniazid[J]. Nat Med, 2006, 12(9):1027–1029.
[15] Vilcheze C, Morbidoni HR, Weisbrod TR, et al. Inactivation of the inhA-encoded fatty acid synthase II (FASII) enoyl-acyl carrier protein reductase induces accumulation of the FASI end products and cell lysis of Mycobacterium smegmatis[J]. J Bacteriol, 2000, 182(14):4059–4067.
[16] Mondino S, Gago G. and Gramajo H. Transcriptional regulation of fatty acid biosynthesis in mycobacteria[J]. Mol Microbiol, 2013, 89(2):372–387.
[17] Salzman V, Mondino S, Sala C, et al. Transcriptional regulation of lipid homeostasis in mycobacteria[J]. Mol Microbiol, 2010, 78(1):64–77.
[18] Biswas RK, Dutta D, Tripathi A, et al. Identification and characterization of Rv0494: a fatty acid-responsive protein of the GntR/FadR family from Mycobacterium tuberculosis[J]. Microbiology, 2013, 159(Pt 5):913–923.
[19] Shi T, Fu T. and Xie J. Polyphosphate deficiency affects the sliding motility and biofilm formation of Mycobacterium smegmatis[J]. Current Microbiology, 2011, 63(5):470–476.
[20] Chuang YM, Dutta NK, Hung CF, et al. Stringent Response Factors PPX1 and PPK2 Play an Important Role in Mycobacterium tuberculosis Metabolism, Biofilm Formation, and Sensitivity to Isoniazid In Vivo[J]. Antimicrob Agents Chemother, 2016, 60(11):6460–6470.
[21] Thayil SM, Morrison N, Schechter N, et al. The role of the novel exopolyphosphatase MT0516 in Mycobacterium tuberculosis drug tolerance and persistence[J]. PLoS One, 6(11):e28076.
[22] Sureka K, Sanyal S, Basu J, et al. Polyphosphate kinase 2: a modulator of nucleoside diphosphate kinase activity in mycobacteria[J]. Mol Microbiol, 2009, 74(5):1187–1197.
*基金项目:湖北民族大学大学生创新创业训练计划项目(批准号: S202510517024)资助
▲通讯作者:石廷玉,湖北民族大学医学部
相关文献推荐
- 节点文献
- 读者推荐
- 相关基金文献
- 关联作者
- 相关视频
- 批量下載
