
- DOI:
10.13738/j.cnki.acc.qklw60536
- 专辑:
科学Ⅰ辑;信息科技
- 专题:
信息、科学;综合科技
- 分类号:
G90;N92
摘要:目的 基于IRE1a/JNK通路探讨丁苯酞对2型糖尿病模型小鼠认知功能的影响。方法 16只健康雄性C57BL/KsJ-db/db小鼠随机分为干预组和模型组,另选取同窝出生同周龄C57BL/KsJ-db/m小鼠8只作为正常组。干预组予以丁苯酞120mg·kg-1·d-1灌胃,正常组和模型组均予同等量植物油灌胃,共6周。期间观察各组小鼠一般情况,每周测量体质量及随机血糖;通过水迷宫定位航行及空间探索实验检测小鼠的行为学能力,电生理学实验检测其海马区长时程增强(LTP),HE染色法观察海马组织结构变化,应用实时荧光定量PCR和Western蛋白免疫印迹法检测小鼠海马IRE1a、JNK及凋亡相关蛋白Bcl-2的表达情况。结果 与正常组比较,水迷宫中模型组小鼠逃避潜伏期延长,平均穿越平台次数以及目标象限游泳时间百分比减少(P<0.05),海马CA1区细胞排列紊乱,出现不同程度的细胞缺失,海马CA1区LTP明显降低(P<0.05),海马IRE1a及JNK表达水平均增高,Bcl-2表达下降(P<0.05)。与模型组比较,干预组小鼠水迷宫逃避潜伏期减少,平均穿越平台次数以及目标象限游泳时间百分比增加(P<0.05),海马CA1区组织病理损伤明显改善,海马区LTP升高,海马IRE1a及JNK表达水平下降,Bcl-2表达升高(P<0.05)。结论 丁苯酞能改善糖尿病小鼠的学习记忆障碍和海马区LTP受损,其机制可能与抑制海马IRE1a /JNK信号通路降低细胞凋亡有关。
【关键词】糖尿病;认知功能障碍;丁苯酞;长时程增强;IRE1a /JNK通路
Effect of L-3-n-Butylphthalide on cognitive dysfunction in diabetic mice and the role of IRE1a/JNK signaling pathway
Ji Suxiao, Niu Jinlong,Zhang Jing,Pan Jianxiu,Zhang Lisha,Wang Haifang (Handan First Hospital, Handan 056000,China)
Abstract:objective :Study on the effect of L-3-n-Butylphthalide on cognitive impairment in diabetic mice based on IRE1a/JNK Pathway. Methods Sixteen male C57BL/KsJ-db/db mice were randomly divided into model group and intervention group, and eight db/m mice of the same age were served as the normal group. The animals in intervention group were given L-NBP and those in model group and normal group were given vegetable oil by oral gavage. After 6 weeks of feeding, the general situations of mice were recorded. Body mass and random blood glucose were measured. Navigation and spatiale exploration experiences were performed to evaluate behavioral ability. Electrophysiological experiment was used recorded the LTP in hippocampal CA1 area. The morphological changes in hippocampus were observed by HE staining. The expressions of IRE1a, JNK and Bcl-2 mRNA and protein were detected by Reverse transcription polymerase chain reaction and Western blotting in the hippocampus. Results Compared with the normal group, escape latency was significantly longer in model group(P<0.05), the number of target crossings in 90 s and the percentage of swimming time of the target quadrant in the target quadrant significantly were decreased(P<0.05), and PS amplitude significantly was decreased in the electrophysiological experiments(P<0.05). The arrangement of cells in the CA1 area of the hippocampus is disordered, with varying degrees of cell loss.Compared with the model group, escape latency was significantly decreased in intervention group(P<0.05), the number of target crossings in 90 s and the percentage of swimming time of the target quadrant in the target quadrant significantly were increased(P<0.05), PS amplitude significantly was increased, and the morphological changes were alleviated in the intervention group. The expression levels of IRE1a and JNK in the hippocampus were decreased, while the expression of Bcl-2 was significantly increased in the intervention group (P<0.05).Conclusion NBP can improve learning and memory impairment and the LTP damage in hippocampus of diabetes mice, and its mechanism may be related to inhibition of IRE1a/JNK signaling pathway.
【Key words】diabetes; cognitive dysfunction; butylphthalide; LTP; IRE1a/JNK pathway
糖尿病认知功能障碍(Cognitive Impairment in Diabetes,CID),作为糖尿病的一种潜在并发症,逐渐引起人们的关注。在一项回顾性队列研究中显示,2型糖尿病患者患痴呆症的风险比正常人高了1.37倍[1]。因此,目前迫切需要一种有效的治疗策略预防或治疗CID。丁苯酞作为一种新型脑保护药物,具有减少神经元凋亡、保护线粒体功能等作用[2]。有研究证实,丁苯酞在改善糖尿病认知障碍方面效果显著,但作用机制尚未明确[3]。海马是参与学习记忆的重要脑区,该区内质网应激(endoplasmic reticulum stress,ERS)通路的持续激活可促使认知障碍的发生[4]。ERS可促使肌醇依赖酶1a(IRE1a)-c-Jun氨基末端激酶(JNK)通路激活[5,6],该通路活化后通过抑制B淋巴细胞瘤2(Bcl-2)的表达,促使神经细胞凋亡,影响突触可塑性。IRE1a/JNK信号通路的持续激活,可能为CID的发生机制之一。鉴于此,本研究考察了丁苯酞对IRE1a/JNK信号通路的影响,并从行为学、电生理学、组织生物学结果关联分析,揭示丁苯酞改善CID的分子机制,为临床治疗提供理论性依据。
1材料
1.1 实验动物
6周龄健康雄性2型糖尿病小鼠(简称:db/db小鼠)共16只,对照组正常雄性小鼠(简称:db/m小鼠)共8只,SPF级,由北京大学医学部实验动物科学部供给,生产许可证号:SCXK(京)2011-0012,小鼠在常规实验室条件下(20℃~22℃,相对湿度50%~60%)均独立饲养,昼夜交替光照,实验前适应性喂养1周。
1.1.2 药品与试剂:丁苯酞(纯度>99%,石药集团恩必普药业有限公司);实时荧光定量PCR试剂盒和反转录试剂盒(大连TaKaRa公司);IRE1a多克隆抗体(英国Abcam公司)、BCL2多克隆抗体(英国Abcam公司)、 JNK单克隆抗体(美国CST公司);内参β-actin抗体(美国CST公司)。
1.2 仪器
Morris水迷宫(安徽淮北正华生物仪器设备有限公司); STRONG90高速牙科台式手术钻(韩国SΛESHIN公司);显微镜(日本Olympus公司);卓越血糖仪(德国罗康全公司)。
2方法
2.1 动物分组与给药
6周龄杂合子db/m小鼠设为正常组(8只),db/db小鼠随机分为2组:模型组(8只),干预组(8只)。其中干预组给予溶解于植物油中的丁苯酞灌胃(120mg·kg-1·d-1),模型组和正常组则灌胃同等体积的植物油,共6周。实验过程中,所有小鼠每周进行随机血糖及体重监测。
2.2 Morris水迷宫实验
药物干预结束后进行行为学实验,Morris水迷宫水池共分为Ⅰ、Ⅱ、Ⅲ、Ⅳ4个象限,设第Ⅲ象限为目标象限,置平台于水面下1.5cm处,周围遮光。前5d为定位航行实验测定,其中第1天为适应性训练,每天上午将小鼠从不同象限入水,小鼠入水寻找到平台的时间则记录为逃避潜伏期,用于评价小鼠空间学习能力。第6 d为空间探索实验测定,将圆形平台从水中取出,记录小鼠90s内穿过原平台所在区域的次数及在目标象限停留时间百分比,用于评价小鼠空间记忆能力。
2.3 群峰电位检测
结束水迷宫实验后,进行小鼠海马LTP的诱发与记录,于腹腔注射乌拉坦(1.5 g/kg)将小鼠麻醉后,将其头部固定在立体定位仪上,确定前囟、海马穿通纤维通路(PP,前囟后3.8mm,中缝旁3.0mm)与齿状回(DG,前囟后2.0mm,中缝旁1.4mm)的坐标,在颅骨表面对PP和DG坐标进行标记并钻孔,将刺激电极和记录电极分别定位在上述坐标上方,并缓慢下插电极至预定深度,深度为小鼠硬脑膜下1.5mm。予适当电流刺激,诱发出稳定群峰电位(populatin spike,PS),PS持续记录30min作为基值。30min后给予串刺激,参数400Hz,8串,重复3次,间隔10s,串刺激后,将参数恢复至刺激前水平,再记录60 min。其诱发成功的判断标准:串刺激后PS增幅≥30%,维持时间≥30min。
2.4 标本收集与处理
群峰电位测定结束后进行取材,将小鼠置于冰台上,断头后于枕骨大孔处剪短枕骨与顶骨,打开颅骨,用镊子钝性分离出双侧海马组织,3只置于4%多聚甲醛中,用于制作切片,5只置于冻存管中-80 ℃保存。
2.5 实时荧光定量PCR检测
Trizol法(美国Invitrogen公司)抽提海马组织总RNA,定量RNA后,按试剂盒说明逆转录合成cDNA,PCR引物由美国Invitrogen公司合成。IRE1:上游引物5'-GGAGACCCTACGCTATTTGACCT-3 ',下游引物:5'-TTGCTGACAATCTTGAGGGA
G-3';JNK: 上游引物5'-TCCAGCACCCGTACATCAA-3',下游引物:5'-TCTTAGTTCGCTCCTCCAAATC-3';Bcl-2:上游引物5´-ACTCTTCAGGGATGGG
GTGA-3´,下游引物 5´-TGACATCTCCCTGTTGACGC-3´;β-actin:上游引物:5'-CGCTAACATCAAATGGGGTG -3',下游引物:5 '-TTGCTGACAATCTTGAGGGAG-3',扩增条件为: 95℃预变性1min(95℃变性30s,60℃退火30 s)×40个循环,72℃延伸10min。反应结束后获得Ct值,定量分析IRE1、JNK和Bcl-2的相对含量。
2.6 蛋白质免疫印迹分析
取出液氮保存的小鼠海马组织,经充分裂解、离心后,提取总蛋白,BCA试剂盒测定浓度;每个标本取40ug上样,配置分离胶,进行恒压电泳,转PVDF膜后封闭液室温封闭1 h,滴加一抗( 稀释比例IRE1a、Bcl-2为1∶1000、JNK为1:2000),4℃孵化过夜;次日TBST清洗,加入二抗( 1∶10000),孵育30min后,根据不同的光强度调整曝光条件,胶片扫描存档,AlphaEaseFC 软件处理系统分析目标带的光密度值,按公式OD=目的蛋白表达强度/β-actin表达强度,计算出相对表达量。
2.7 光学显微镜
观察小鼠海马HE染色后的神经元结构:冰冻切片固定,脱蜡、清水洗涤后,苏木素染色、伊红染色,再次脱水透明、中性树胶封片。显微镜下观察海马CA1区神经元细胞形态并采集图片。
2.8 统计学处理
采用SPSS 23.0软件进行统计分析,所有数据以x̄±s表示,组间比较用重复测量及单因素方差分析,多组间两两比较采用LSD法,P<0.05表示差异有统计学意义。
3 结果
3.1 一般情况和行为学表现
与正常组相比,模型组和干预组小鼠血糖和体质量均明显升高,差异有统计学意义(P<0.05)。模型组与干预组的血糖及体质量相比,差异无统计学意义(P>0.05,见表1)。对照组小鼠毛色发亮,精神状态良好,反应灵敏,摄食摄水量正常,笼内垫料更换较少;模型组小鼠皮毛枯黄、黯淡无光,少数毛发脱落,动作迟缓,好吃懒动,饮水量、摄食量增加,垫料频繁更换。干预组较模型组小鼠精神状态较好,反应灵敏,体能恢复,饮水量减少。
表1 各组小鼠血糖及体重表现( ±s)
Tab.1 Comparison of the blood glucose and weight in mice of all groups (± s)
组别 | 血糖(mmol/L) | 体质量(g) |
正常组 | 9.33±0.71 | 25.74±1.66 |
模型组 | 22.08±1.49 * | 58.13±2.38* |
干预组 | 21.98±1.59* | |
P值 | <0.05 | <0.05 |
注:与正常组比较,*P<0.05
Note: Compared with normal group, *P<0.05
定位航行实验中,模型组和干预组小鼠的逃避潜伏期均明显长于正常组(P<0.05);自第2日起,干预组小鼠的逃避潜伏期较模型组明显减少(P<0.05,见图1)。空间探索实验中,模型组和干预组小鼠的穿越平台次数明显少于正常组[(2.88±0.99)次,(4.38±0.92)次 vs (7.00±0.93)次,P<0.05],干预组小鼠的穿越平台次数明显高于模型组。在90s内,模型组和干预组小鼠在原平台所在象限停留百分比明显低于正常组[(27.68±3.89)%,(48.49±3.58)% vs (54.67±2.32)%,P<0.05];而干预组小鼠停留百分比明显长于模型组,差异有统计学意义(P<0.05)。
图1 各组小鼠Morris水迷宫逃避潜伏期变化
Fig. 1 The changes of escape latency of the mice in different groups.
Note: Compared with normal group, aP<0.05;Compared with model group, bP<0.05
给予高频刺激后,模型组海马区PS的幅值平均增加到刺激前的132.32±2.44%;而正常组的PS幅值明显增大,平均增加到刺激前的250.97±8.45%,与模型组相比,具有显著的统计学差异(P<0.05);而干预组给予药物干预后引起的PS幅值增大(平均170.21±4.19%),明显高于模型组,有显著统计学差异(F=28.03,P<0.05,见图2)。
图2 各组小鼠群峰电位幅度变化
图2 各组小鼠PS幅值变化
Fig. 2 The changes of PS amplitude of the mice in different groups.
Note: Compared with normal group, aP<0.05;Compared with model group, bP<0.05
正常组CA1区椎体细胞层神经元细胞排列整齐、染色清晰,细胞形态规则,核仁明显,胞质清楚。模型组与正常组比较,CA1区椎体细胞层神经元细胞排列紊乱、松散,细胞缺失、形态不规则,部分细胞核发生固缩。干预组与模型组比较,神经元细胞损伤程度减轻,结构及细胞排列有所恢复,见图 3。
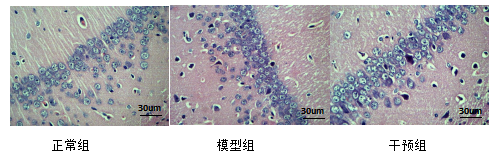
图 3 光镜下苏木素-伊红染色后各组小鼠海马 CA1 区神经元细胞结构( × 400)
Fig. 3 Structures of the hippocampal CA1 field neurons in mice of all groups by light microscope with hematoxylin
-eosin staining ( × 400)
3.4 实时定量PCR检测各组小鼠海马区IRE1a和Bcl-2的mRNA表达
与正常组相比,模型组和干预组海马IRE1a和JNK mRNA表达量显著增高,Bcl-2表达水平降低(P<0.05);与模型组相比,干预组的IRE1a和JNK mRNA表达量显著降低,Bcl-2表达水平升高,但仍低于正常组,差异有统计学意义(P<0.05,见表2)。
表2 各组小鼠海马区IRE1a、JNK和Bcl-2的mRNA表达量比较(x̄±s,n=5)
Tab.2 The expression of IRE1a、JNK and Bcl-2 mRNA in different groups(x̄±s, n=5)
组别 | IRE1a | JNK | Bcl-2 |
正常组 | 1.07±0.10 | 0.63±0.06 | 1.54±0.08 |
模型组 | 1.95±0.11* | 0.97±0.08* | 1.01±0.11* |
干预组 | 1.48±0.12*# | 0.77±0.05 *# | 1.32±0.13 *# |
F值 | 78.86 | 33.17 | 29.89 |
P值 | <0.05 | <0.05 | <0.05 |
注:与正常组比较,*P<0.05;与模型组比较,#P<0.05
Note: Compared with normal group, *P<0.05;Compared with model group, #P<0.05
3.5 Western-blot检测各组小鼠海马区IRE1a、JNK和Bcl-2的蛋白表达
与正常组相比,模型组和干预组海马IRE1a和JNK蛋白表达量显著增高,Bcl-2表达水平下降(P<0.05);与模型组相比,干预组IRE1a和JNK蛋白表达量显著下降,Bcl-2表达水平增高,但仍低于正常组,差异有统计学意义(P<0.05,见表3,图4)。
表3 各组小鼠海马区IRE1a、JNK和Bcl-2的蛋白表达量比较(x̄±s,n=5)
Tab. 3 The expression of IRE1a、JNK and Bcl-2 protein in different groups(x̄±s, n=5)
组别 | IRE1a | JNK | Bcl-2 |
正常组 | 0.56±0.07 | 0.56±0.07 | 1.42±0.07 |
模型组 | 1.27±0.09* | 1.27±0.09* | 0.54±0.08* |
干预组 | 1.09±0.14*# | 1.09±0.14 *# | 1.04±0.07 *# |
F值 | 67.65 | 102.69 | 173.32 |
P值 | <0.05 | <0.05 | <0.05 |
注:与正常组比较,*P<0.05;与模型组比较,#P<0.05
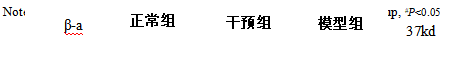
Fig.4 The expression of IRE1a, p-JNK和Bcl-2 protein in different groups
4 讨 论
伴随糖尿病患病率的不断升高,CID也逐渐引起人们的关注。CID主要表现为学习记忆能力、执行力、注意力下降,计算速度减慢及语言流畅度的下降。CID发病机制复杂,且发病初期症状隐匿,不易发现,故临床及早采取有效的治疗措施尤为重要。但是,目前临床上还没有针对CID的治疗药物。丁苯酞在临床上被证明是一种治疗缺血性中风和血管性痴呆的神经保护药物[7]。丁苯酞不仅能够重构微循环、改善脑代谢,而且能够激活相关通路、改善空间学习及记忆能力。然而,有关丁苯酞在CID中的保护作用及潜在机制较少被研究。
db/db小鼠是由于基因突变导致的自发性2型糖尿病小鼠,近年来常作为研究2型糖尿病及其并发症的小鼠模型。研究发现,这种小鼠模型在出生3-4周后就会出现肥胖、高血糖、高血脂、尿糖等一系列高糖症状,具有与年龄相关的认知能力受损、脑萎缩等表现[8],其行为及生理特征与人类2型糖尿病患者极为相似。因此,目前被认为是理想的2型糖尿病动物模型。啮齿类动物的认知功能经常通过Morris水迷宫来评价[9],本研究结果显示,模型组小鼠逃避潜伏期明显长于正常组,目标象限停留时间百分比与穿越平台次数显著下降,表明模型组小鼠已出现学习记忆能力减退的病态特征。丁苯酞干预后显著缩短了小鼠的逃避潜伏期,表明丁苯酞对糖尿病诱导的认知缺陷有保护作用。
海马区对于血糖十分敏感,是负责学习和记忆的重要脑区[10],海马CA1区对LTP至关重要。本研究中,我们进一步分析了db/db小鼠突触活动和LTP的变化机制。与水迷宫观察到的空间记忆结果相一致,电生理实验中,模型组小鼠PS幅值下降明显,LTP被抑制。丁苯酞干预后PS幅值显著增高,增强了突触可塑性。为进一步确定丁苯酞对CID的影响机制,通用光学显微镜检测了海马区神经元的病理结构变化。研究发现,在阿尔兹海默症早期阶段,海马组织即观察到了部分神经元缺失、胞核固缩等现象[11],同样,在db/db小鼠中也观察到了类似变化,表明在糖尿病进展过程中出现了神经元受损,丁苯酞干预后,紊乱的细胞排列及超微结构异常也有所恢复,这些发现也在组织学方面得到了证实。
持续的ERS将诱导神经细胞凋亡[12],目前已有研究表明ERS与糖尿病大鼠认知障碍密切相关,减轻ERS可改善糖尿病大鼠的认知功能[13,14]。IRE1a/JNK通路为ERS诱导细胞凋亡的一种途径。IRE1α是一种跨膜蛋白,在非ERS条件下,IRE1α与内质网分子伴侣结合在一起,处于一种无活性状态。当内质网内异常折叠蛋白发生聚集触发ERS反应时,内质网分子伴侣与IRE1α迅速发生解离,IRE1α通过发生二聚化和自身磷酸化被激活。活化后的IRE1α可进一步募集TRAF2(肿瘤坏死因子受体相关因子2)、ASK1(凋亡信号调节激酶1)等相关蛋白,形成复合物,促使其下游JNK被磷酸化激活[15],活化的JNK通过抑制Bcl-2的表达,造成细胞的程序性死亡[16]。
本实验结果显示,与正常组相比,模型组小鼠海马组织海马IRE1a、JNK表达水平明显增加,Bcl-2的表达下降,说明高糖刺激IRE1a/JNK通路被激活,ERS可能是导致糖尿病小鼠突触可塑性下降及认知障碍的重要因素,丁苯酞干预后IRE1a、JNK表达水平明显下降,Bcl-2的表达增高,说明丁苯酞可有效抑制内质网相关蛋白的活性,保护海马神经元免于凋亡,从而改善小鼠的认知缺陷。
综上所述,糖尿病认知功能损伤的小鼠中,存在IRE1a/JNK信号通路的激活和突触可塑性的改变,丁苯酞能够抑制IRE1a/JNK信号通路的激活,增强突触可塑性,改善糖尿病小鼠学习记忆功能。然而,内质网应激机制复杂,丁苯酞是否作用于其他路径调控内质网应激?仍需我们进一步探究,旨在为CID的治疗寻找治疗靶点、提供理论依据。
参考文献
[1] K.Smolina CJ, Wotton MJ. Goldacre. Risk of dementia in patients hospitalised with type 1 and type 2 diabetes in England, 1998-2011: a retrospective national record linkage cohort study[J]. Diabetologia,2015, 58 (5): 942–950.
[2] Han JB, Shi XW, Xu JJ, et al. DL-3-n-butylphthalide prevents oxidative stress and atherosclerosis by targeting Keap-1 and inhibiting Keap-1/Nrf-2 interaction[J].European Journal of Pharmaceutical Sciences,2022,172,106164
[3]Wang BN, Wu CB, Chen ZM, et al. DL-3-n-butylphthalide ameliorates diabetes-associated cognitive decline by enhancing PI3K/Akt signaling and suppressing oxidative stress[J].Acta Pharmacologica Sinica,2021,42(3):
347-360
[4] Zheng YQ, Zheng Y, Yang YJ, et al. Metabonomic profiles delineate potential role of glutamate-glutamine cycle in db/db mice with diabetes-associated cognitive decline[J]. Molecular brain, 2016, 9(1):40
[5] Kong FJ,Ma LL,Guo JJ,et al.Endoplasmic reticulum stress/autophagy pathway is involved in diabetes-induced neuronal apoptosis and cognitive decline in mice[J].Clinical Science,2018,132(1):111-125.
[6] Duran-Aniotz, Cornejo VH, Espinoza S, et al. IRE1 signaling exacerbates Alzheimer’s disease
pathogenesis[J]. Acta Neuropathologica, 2017,134(3):489-506
[7] Zhao SS, Liu FX, Shi W, et al. DL-3-n-butylphthalide promotes hippocampal neurogenesis and reduces mossy fiber sprouting in chronic temporal lobe epilepsy rats[J]. BMC neurology. 2022, 22 (1):3
[8] Zhang JW, Zhang YX, Yuan Y, et al. Gut Microbiota Alteration Is Associated With Cognitive Deficits in Genetically Diabetic (Db/db) Mice During Aging[J]. Frontiers in aging neuroscience,2022,13:815562.
[9] Ying DB,Lai YL,Krista C,et al. Cognitive Evaluation Using Morris Water Maze in Neurotrauma[J].Methods in molecular biology, 2016, 1462:539-551
[10]Swati Jain , John J LaFrancois , Justin J Botterill ,et al.Adult neurogenesis in the mouse dentate gyrus protects the Hippocampus from neuronal injury following severe seizures[J].Hippocampus, 2019, 29( 8) : 683-709.
[11] Baloyannis SJ, Mavroudis I, Mitilineos D, et al. The hypothalamus in Alzheimer’s disease: a Golgi and electron microscope study. Am J Alzheimers Dis Other Demen. 2015 Aug;30(5):478–487.
[12] Afroze D, Ashok A.ER stress in skeletal muscle remodeling and myopathies[J].FEBS Journal,2019,286
(2):379-398.
[13] Chen J, Bi, YL,Chen L,et al. Tanshinone IIA exerts neuroprotective effects on hippocampus-
dependent cognitive impairments in diabetic rats by attenuating ER stress-induced apoptosis[J].Biomed Pharmacother,2018,104(1):530-536.
[14] Li, HY, Wang, XC,Xu, YM, et al. Berberine Improves Diabetic Encephalopathy Through the SIRT1/ER Stress Pathway in db/db Mice[J]. Rejuvenation Res,2018,21(3):200-209
[15] Hu XL , Cai JY , Zhu JY, et al. Arsenic Trioxide Potentiates Gilteritinib-induced Apoptosis in FLT3-ITD Positive Leukemic Cells via IRE1a-JNK-mediated Endoplasmic Reticulum Stress[J].Cancer cell international,
2020,20(1):250
[16] Ni HB, Rui Q, Li D, et al. The role of ire1 signaling in the central nervous system diseases[J].Current
Neuropharmacology,2018,16(9):1340-1347
相关文献推荐
- 节点文献
- 读者推荐
- 相关基金文献
- 关联作者
- 相关视频
- 批量下載
