
- DOI:
10.13738/j.cnki.acc.qklw60536
- 专辑:
科学Ⅰ辑;信息科技
- 专题:
信息、科学;综合科技
- 分类号:
G90;N92
摘要:对于肿瘤干细胞的研究,建立了肿瘤干细胞(CSCs)分选以及培养平台,并建立了小鼠肿瘤模型。在我们的前期实验中,通过筛选,我们发现一种新的lncRNA snora73b对晚期结肠癌干细胞可能有调节作用。目前,对snora73b的研究少见报道,然而,其在肿瘤干细胞中作用值得关注。在TCGA-CRC数据库中通过edgeR的差异性分析可以观察到我们的目标基因lncRNA snor73b差异属于表达显著组中,qPCR结果显示snora73b在结肠癌组织标本中显著高于正常组织。过表达的snora73b在细胞增殖、迁移和侵袭能力明显增强(均p<0.05)。qPCR和Western blot检测细胞诱导前后DCLK1的mRNA和蛋白表达,结果显示经过细胞诱导后的标志分子不论是在RNA水平还是蛋白水平均有明显表达。针对目前肿瘤研究的热点问题,利用我们医院临床病例资源以及本项目组工作基础,以肿瘤干细胞(CSCs)为切入点,通过研究snora73b对CSCs的促增殖作用的机制, 明确snora73b作为新的CSCs分子标志和治疗新靶点潜在临床应用价值,为针对CSCs的肿瘤治疗奠定基础。
关键词:结肠癌;lncRNA;snora73b;肿瘤干细胞;
【基金项目】哈尔滨医科大学创新基金(项目编号2017LCZX69)
一、研究背景:
全球最新的癌症数据报告,结直肠癌已经成为全球第三大常见的癌症,尽管在高收入经济群体中平均的发病年龄患者的发病率稍有下降,但是在新兴的经济体中发病率却在不断的持续攀升,尤其是在50岁以下的早期结直肠癌患者数量显著增加。在美国,结直肠癌所致的死亡位于癌症所致死亡的第二位,预计到2030年全世界结肠癌年发病率将超过110万人(Ghafori, 2021)。目前,结肠癌在我国大多数地区已经成为发病率上升最快的恶性肿瘤之一,结肠癌是常见的发生于结肠部位的消化道肿瘤,好发于直肠与乙状结肠交界处,以40到50 岁年龄组发病率最高,男女比例为2-3:1。近年来,随着PD-1,ADC、双免疫以及双抗等药物的研发及应用已经逐步改善了晚期转移性结直肠癌患者的总体生存率,然而对于大部分晚期的患者来说,治疗的目的依然是姑息性的,因此对于进一步探索结直肠癌的发病机制具有重要的临床意义。
肿瘤干细胞对肿瘤的存活、增殖、转移及复发有着重要作用。从本质上讲,肿瘤干细胞通过自我更新和无限增殖维持着肿瘤细胞群的生命力;肿瘤干细胞的运动和迁徙能力又使肿瘤细胞的转移成为可能;肿瘤干细胞可以长时间处于休眠状态并具有多种耐药分子而对杀伤肿瘤细胞的外界理化因素不敏感,因此肿瘤往往在常规肿瘤治疗方法消灭大部分普通肿瘤细胞后一段时间复发。临床治疗中由于肿瘤药物抵抗,转移复发等是导致治疗失败的主要原因(Hu, 2012)。
近年来,针对肿瘤干细胞的长链非编码RNA(Long non-coding RNA,lncRNA)的研究逐渐成为热点,为人们了解肿瘤干细胞的特点和诊断肿瘤提供了新的思路。lncRNA不编码蛋白质,但由于其在不同组织和发育阶段的特异性表达,被普遍认为具有重要的生物学意义(Kung, 2013)。lncRNAs在维持肝细胞全能型、调控干细胞基因表达、调节肝细胞自我更新和分化等方面发挥了至关重要的作用,是继microRNA后肿瘤研究的新热点(Hamdy, 2024)。
人们在肿瘤干细胞中也发现了许多异常表达的lncRNA。如lncRNA H19在胃癌肿瘤干细胞中的高表达(Li, 2014; Hashemi, 2022),lncTCF7在肝癌肿瘤干细胞中的高表达(Wang, 2015)。最近有研究证实lnc-DILC显著增强了肝癌干细胞的增殖能力(Wang, 2016),降低lncRNA HOTAIR的表达可以显著减弱大肠癌干细胞的浸润能力(Dou, 2016),HIF2PUT的表达水平与骨肉瘤干细胞的自我更新能力负相关(Wang, 2014)。然而,有关lncRNA在晚期结直肠癌中的作用及机理尚不明确。因此,阐明lncRNA在晚期结直肠肿瘤干细胞中的调控作用,可以帮助人们了解肿瘤干细胞的存在及发展机制,为结直肠肿瘤治疗提供新的突破口。前期实验中我们构建了snora73b过表达质粒,转染结肠癌细胞后,通过流式细胞仪分析发现肿瘤干细胞标志物增高,这个结果提示我们需要深入研究长非编码RNAsnora73b在结直肠癌干细胞中的促增殖作用。
二、材料及方法:
1. 组织标本:
于2018年至2023年于我院结直肠外科收集75例结肠癌患者病理组织,样本储存为石蜡包埋本研究,且所有患者于手术前未行任何相关抗肿瘤治疗,该研究获得我院伦理委员会的伦理批准,样本收集均获得患者知情同意,签署书面知情同意书。
2. RT-PCR
利用RIzol(Invitrogen)从细胞中提取RNA,根据Takara PrimeScrip RT-PCR Kit说明书将提取的RNA逆转录为cDNA,再进行PCR扩增,最后利用1-2%琼脂糖凝胶进行产物分析。反应条件为94℃ 5min,循环30次,延伸72℃ 10min。扩增后的产物保存于4℃。
3. 细胞培养及细胞转染
结肠癌细胞系SW480用L15+10% FBS+1% P/S (37℃;100%空气;饱和湿度),或DMEM+10% FBS+1% P/S (37℃;5% CO2;饱和湿度)。SW480生长壮腰良好时,按1X10⁶个密度接种于6孔板中,常规培养24h后细胞贴壁生长,按RFect转染试剂盒说明书进行转染。
4. 细胞增殖、迁移、侵袭试验
将snora73b的SW480细胞进行培养24h后,常规消化并悬浮于10%FBS培养基中进行细胞密度调整并接种于96孔板中。当细胞贴壁加入MTS试剂并于培养箱培养2h后利用酶标光密度仪器进行增殖曲线测定。利用划痕试验,将转染的细胞以2X10⁵个细胞/孔的密度接种到6孔板中,当细胞融合率达到80%时进行划痕,并于划痕后24h后测量细胞迁移程度。利用无血清培养基稀释基质胶并加入Transwell小室,后进行37℃培养箱孵育2h。将浓度为1X105个细胞/ml进行种板于上室,下室加入500ul 10%FBS,常规培养24h后显微镜下观察穿膜细胞计数。
5. Western Blotting
收集细胞后进行RIPA裂解液裂解并提取细胞蛋白,根据BCA试剂盒测定蛋白浓度。将样本上样于12%SDS-PAGE胶进行电泳,电影结束后将蛋白转移至PVDF膜上,用5%脱脂奶粉室温封闭1h,再加入一抗于4℃摇床上过夜,PBS洗膜3次后加入二抗,室温摇床1h,PBS清洗后进行发光显影并且采集图像。
6. 统计学分析
所有的实验均重复3次及以上,由SPSS version. 25及Graph Prism version 9.0软件完成所有的统计学分析。数值变量使用Kolmogorov-Smirnov检验数值的正态分布情况。实验的数据以平均值±标准偏差(SD)表示。多组间的比较使用单因素方差分析(one-way ANOVA),两组间的比较采用Student’s t-检验,两个变量之间的相关性分析采用Perason 或者Spearman’s rank相关检验。p < 0.05时,为差异具有统计学意义。
三、结果:
1. lncRNAsnora73b在TCGA-CRC数据库中表达水平
为了探索影响结肠癌疾病进展的lncRNA,我们筛选了TCGA-CRC数据库中75局部晚期以及晚期不能手术的肿瘤患者和45名正常患者,通过edgeR的差异性分析,挑选出潜在的lncRNA进行进一步分析。其中,在15个高表达的基因中,我们可以观察到我们的目标基因lncRNA snor73b差异属于表达显著组中(表1,图1)。
名称 | baseMean | log2FoldChange | pvalue |
AL391422.3 | 0.078 | 9.095 | 0.99 |
FP236383.5 | 27.425 | 9.049 | 1.87 |
Snora73 | 149.741 | 9.004 | 2.88 |
LINC02418 | 628.386 | 8.774 | 7.33 |
AC026336.3 | 51.107 | 8.161 | 2.38 |
AC007493.1 | 137.391 | 8.051 | 3.87 |
AC104823.1 | 152.817 | 7.863 | 7.56 |
LINC02474 | 29.841 | 7.456 | 9.96 |
AC073365.1 | 30.231 | 7.405 | 5.95 |
LINC02163 | 28.982 | 7.350 | 2.59 |
AC007099.1 | 25.754 | 7.192 | 8.27 |
LINC01705 | 26.972 | 7.165 | 6.47 |
LINC01811 | 77.275 | 7.104 | 5.11 |
AC105460.1 | 76.844 | 7.075 | 1.32 |
LINC00460 | 79.882 | 7.074 | 4.91 |
表1. TCGA-CRC数据库中高表达组的lncRNA,其中snora73b数据统计中位于高表达组。
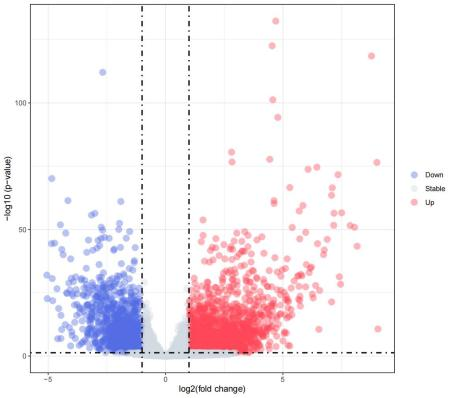
图1. 火山图为TCGA-CRC数据库中所有检索到的数据分布。
2. snora73b在结肠癌中的表达
结合RT-PCR的结果显示,图2A中我们收集的34例晚期结肠癌的组织标本中的相对表达量(5.73±1.77)显著高于正常组织(1.13±0.74),差异具有统计学意义。在结肠癌不同的病理分期中snora73b的表达水平也具有明显的差异性。
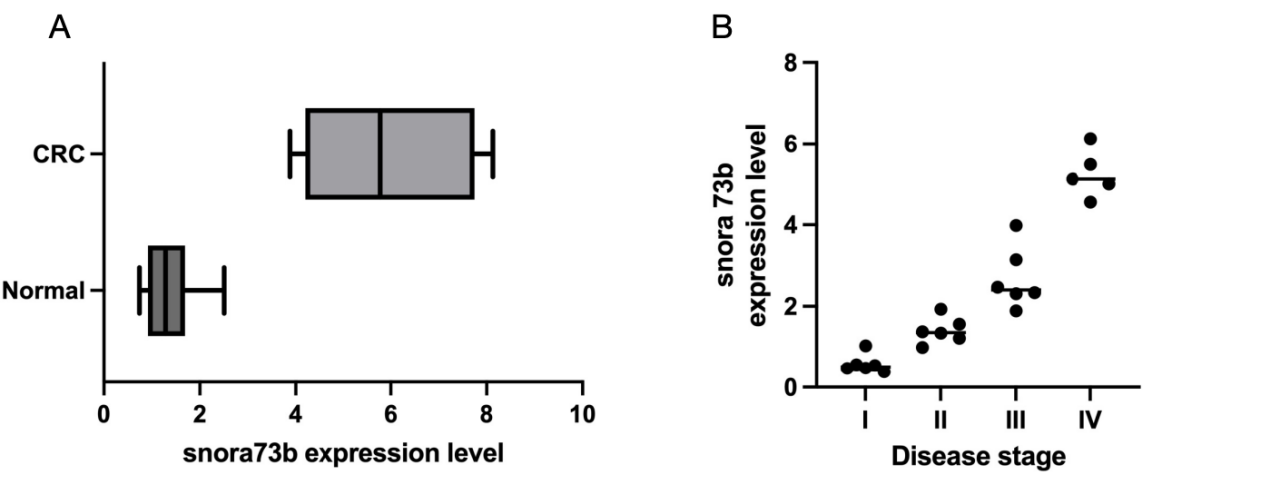
图2.snora73b表达的差异性分析。A在晚期结肠癌患者中与对照组相比具有统计学差异(p<0.05)。B。RT-PCR监测CRC不同临床分期中snora73b的表达水平(p<0.05)。
3. snora73b在CRC患者中促进肿瘤细胞的增殖,迁移以及侵袭能力的评估
snora73b-ASO和snora73b的过表达质粒能够显著影响snora73b的表达(图3A)。细胞增殖试验结果提示,snora73b下调后明显抑制了细胞的增殖能力,而过表达的snora73b的细胞能力明显增强(图3B)。snora73b在Transwell试验中的表达下调,细胞的侵袭力明显下降,而上调后侵袭例显著增强(图3C)。
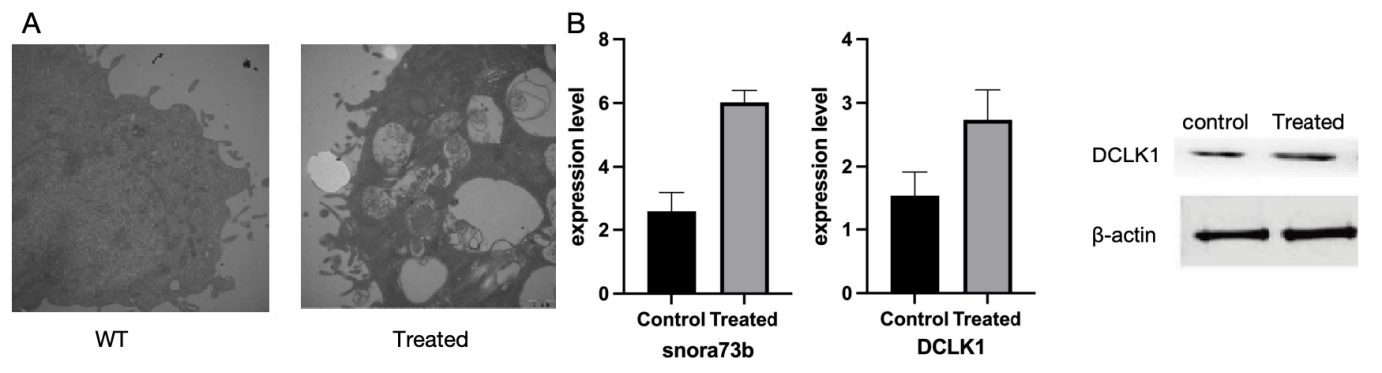
图3. snora73b促进CRC细胞的增殖、迁移和侵袭能力。A. PCR结果显示细胞转染后的snora73b的表达;B. 细胞增殖试验检测低或过表达snora73b对于细胞增殖的影响。
4. snora73在SW480肿瘤细胞株中的高表达
SW480是众多结肠癌细胞系中细胞特征鉴定较为完整的一株,主要表现为上皮细胞株,贴壁生长,细胞多为双极,伴有微绒毛。本研究中将生长状态良好且处于对数生长期中的SW480细胞用富含生长因子的RPMI1640培养基悬浮培养。DCLK1作为细胞的标志分子qPCR和Western blot检测细胞诱导前后DCLK1的mRNA和蛋白表达,结果显示经过细胞诱导后的标志分子不论是在RNA水平还是蛋白水平均有明显表达。
图4. A.未处理的SW480,经过处理后的悬浮细胞团;B.经过诱导前后的snora73b以及标志物DCLK1的mRNA表达变化;C.经过诱导后的蛋白表达变化。
四、研究结论
肿瘤细胞具有自我更新、分化以及增殖的能力,这给肿瘤的治疗带来了巨大的挑战。现阶段越来越多的研究证明snoRNA在癌症干细胞中充当着重要的角色。snora73b已经证实在多种癌症中参与分子通路从而促进肿瘤细胞的增殖和迁移。本研究结果揭示snora73b高表达是导致CRC患者不良预后的重要标志物之一。
参考文献
[1] Dou, J., Ni, Y., He, X., Wu, D., Li, M., Wu, S., Zhang, R., Guo, M., and Zhao, F. (2016). Decreasing lncRNA HOTAIR expression inhibits human colorectal cancer stem cells. Am. J. Transl. Res. 8, 98–108.
[2] Ghafouri-Fard S, Hussen BM, Gharebaghi A, Eghtedarian R, Taheri M. LncRNA signature in colorectal cancer. Pathol Res Pract. 2021 Jun;222:153432. doi: 10.1016/j.prp.2021.153432. Epub 2021 Apr 7. PMID: 33857856.
[3] Hamdy NM, Zaki MB, Rizk NI, Abdelmaksoud NM, Abd-Elmawla MA, Ismail RA, Abulsoud AI. Unraveling the ncRNA landscape that governs colorectal cancer: A roadmap to personalized therapeutics. Life Sci. 2024 Oct 1;354:122946. doi: 10.1016/j.lfs.2024.122946. Epub 2024 Aug 8. PMID: 39122108.
[4] Hashemi M, Moosavi MS, Abed HM, Dehghani M, Aalipour M, Heydari EA, Behroozaghdam M, Entezari M, Salimimoghadam S, Gunduz ES, Taheriazam A, Mirzaei S, Samarghandian S. Long non-coding RNA (lncRNA) H19 in human cancer: From proliferation and metastasis to therapy. Pharmacol Res. 2022 Oct;184:106418. doi: 10.1016/j.phrs.2022.106418. Epub 2022 Aug 28. PMID: 36038043.
[5] Hu, Y., and Fu, L. (2012). Targeting cancer stem cells: a new therapy to cure cancer patients. Am. J. Cancer Res. 2, 340–356.
[6] Kung, J.T.Y., Colognori, D., and Lee, J.T. (2013). Long Noncoding RNAs: Past, Present, and Future. Genetics 193, 651–669.
[7] Li, H., Yu, B., Li, J., Su, L., Yan, M., Zhu, Z., and Liu, B. (2014). Overexpression of lncRNA H19 enhances carcinogenesis and metastasis of gastric cancer. Oncotarget 5, 2318–2329.
[8] Wang, Y., Yao, J., Meng, H., Yu, Z., Wang, Z., Yuan, X., Chen, H., and Wang, A. (2014). A novel long non-coding RNA, hypoxia-inducible factor-2α promoter upstream transcript, functions as an inhibitor of osteosarcoma stem cells in vitro. Mol. Med. Rep.
[9] Wang, Y., He, L., Du, Y., Zhu, P., Huang, G., Luo, J., Yan, X., Ye, B., Li, C., Xia, P., et al. (2015). The Long Noncoding RNA lncTCF7 Promotes Self-Renewal of Human Liver Cancer Stem Cells through Activation of Wnt Signaling. Cell Stem Cell 16, 413–425.
相关文献推荐
- 节点文献
- 读者推荐
- 相关基金文献
- 关联作者
- 相关视频
- 批量下載
