
- DOI:
10.13738/j.cnki.acc.qklw60536
- 专辑:
科学Ⅰ辑;信息科技
- 专题:
信息、科学;综合科技
- 分类号:
G90;N92
摘要 目的:探讨姜黄素与5-氟尿嘧啶联合治疗方案对肝癌 HepG2 细胞的体外协同作用,阐明其相关抗肿瘤机制。方法:CCK-8法检测不同浓度的姜黄素与5-氟尿嘧啶对HpG2细胞活力的影响;生物信息学分析EEF2基因在肝癌及其他癌症中的表达情况,在肝细胞癌中EEF2与AFP表达的相关性,EEF2基因表达与肝癌患者的总体生存率的相关性;转染sh-EEF2到HpG2细胞,HepG2 细胞分为姜黄素组、5-氟尿嘧啶组和姜黄素+5-氟尿嘧啶组 (联合组),流式细胞术检测各组对肝癌细胞凋亡及细胞周期的影响;Western blot检测细胞凋亡相关蛋白B淋巴细胞瘤-2(Bcl-2)、(cleaved caspase-3),细胞周期蛋白D1(CyclinD1)、CDK2及EEF2的表达情况。结果:姜黄素与5-氟尿嘧啶均能降低HpG2细胞活性。与正常肝组织相比,EEF2基因在肝癌及其他多种肿瘤组织中高表达;在肝癌组织中,EEF2的表达与AFP表达呈正相关;EEF2低表达的患者有更高的总体生存率。与单药治疗组相比,姜黄素联合5-氟尿嘧啶组对HpG2细胞抑制增殖,促进凋亡的效果更明显;CyclinD1)、CDK2、bcl2表达降低,cleaved caspase-3表达增加。干扰EEF2表达后,姜黄素组及联合组的促凋亡效果更明显。结论:姜黄素联合5-氟尿嘧啶在体外可明显抑制肝癌 HepG2 细胞增殖,并诱导细胞凋亡,其作用可能与抑制EEF2表达有关。
关键词:姜黄素;5-氟尿嘧啶;肝癌;EEF2基因;凋亡
前言
肝细胞癌(HCC)是全球发病率和死亡率都较高的恶性肿瘤之一[1]。目前肝细胞癌在免疫治疗和分子靶向治疗方面取得很多进展,但(奥沙利铂+5-氟尿嘧啶+亚叶酸钙)仍是晚期患者的一线治疗选择之一[2]。但多数患者的病情在化疗前期得到控制,但后期仍出现耐药及严重的不良反应等情况[3]。因此,如何减少患者的耐药及不良反应仍是研究的重点方向之一。姜黄素是一种具有抗肿瘤、抗炎和抗氧化作用的天然化合物[4]。姜黄素与临床抗肿瘤药物联合应用具有一定的协同作用,能有效地抑制癌细胞生长,降低药物的毒副作用,减少药物剂量,达到增效减毒的效果[5-7]。已有研究表明,姜黄素能够使肝癌细胞耐阿霉素耐药株HepG2/ADM的抗药性逆转,使得其化疗的敏感性增强[8-11]。因此,姜黄素联合5-氟尿嘧啶可能有更强的抗肿瘤效果,但是其联合应用的效果和作用机制尚需进一步研究。真核延伸因子2(EEF2)在肝癌治疗中受到广泛的关注,EEF2的过表达提示肝细胞癌的预后不良[12]。此外,抑制EEF2活性可使肿瘤细胞对化疗药物的敏感性增高[13,14]。本研究通过细胞实验,探索并验证姜黄素联合5-氟尿嘧啶对肝癌 HepG2 细胞的协同作用,并利用生物信息学和分子生物学手段,探索EEF2在其中发挥的作用。
1 材料与方法
1.1实验材料、试剂与仪器
人肝癌细胞系HepG2细胞由扬州大学医学院实验室保存;姜黄素、5-氟尿嘧啶(源叶公司)。DMEM培养液(美国Gibco公司);细胞周期、凋亡试剂盒(碧云天公司);CCK-8试剂盒(碧云天公司);胎牛血清(以色列 BI 公司);2.5%胰酶(美国Gibco 公司);兔源真核延伸因子2(EEF2)、兔源B淋巴细胞瘤-2(Bcell lymphoma-2,Bcl-2)、鼠源β-actin一抗(北京博奥生);活化的胱天蛋白酶3(Cleaved Caspase-3)一抗(美国CST 公司);辣根过氧化物酶(HRP)偶联的羊抗兔及羊抗鼠IgG 二抗(武汉三鹰);细胞蛋白提取试剂盒(北京索莱宝公司)。倒置显微镜(德国蔡司公司);细胞培养箱(美国赛默飞公司);ECL曝光仪、蛋白电泳仪、酶标仪(美国伯乐公司);流式细胞仪(美国贝克曼公司)。
1.2 细胞培养
从-80℃冰箱中选择传代数较少的HepG2细胞进行复苏培养,细胞培养液为含10%胎牛血清和1% 青霉素/链霉素的 DMEM 培养基。选择生长周期为指数期的细胞进行后续操作,经 2.5% 胰蛋白酶消化后,以 1.0×10⁵个/mL 密度均匀铺到细胞培养皿中,当细胞生长到80-90%融合度进行传代处理。
1.3 细胞转染
根据说明书将Sh-EEF2、相应的阴性对照用Lipofectamine2000试剂进行HepG2细胞的转染。
1.4 CCK-8 法检测细胞活力
HepG2细胞以 2.0×10⁵个/mL 密度均匀铺到 96 孔板中,将姜黄素、5-氟尿嘧啶终浓度设置为0、1、2.5、5、10、25 µmol/L,每组设置3个复孔以降低实验误差。24小时后,每孔加入10 µL的CCK-8溶液,置于37 ℃、5%CO2细胞培养箱中避光孵育1.5 h。以450 nm波长检测各孔细胞光密度(OD)值,计算得到细胞活力情况。
1.5 细胞分组及干预
生长状态良好的HepG2细胞分为对照组(正常培养)、姜黄素干预组(5 µmol/L)、5-氟尿嘧啶(2µmol/L)干预组、姜黄素+5-氟尿嘧啶干预组(联合组)。
1.6 TCGA数据库分析
登录GEPIA2在线数据库(http://gepia2.cancer-pku.cn/),设定如下筛选条件,(1)Gene:EEF2;(2)CancerType:Hepatocellular carcinoma;(3)Analysis Type:Cancer VS Normal Analysis;(4)Threshold By:P<0.05;(5)Fold Change:2。368例肝癌患者样本与160 例健康人肝组织样本的 RNAseq 数据分别从TCGA(The Cancer Genome Atlas Program)数据库(https://portal.gdc.com)及 GTEx(Genotype-Tissue Expression)数据库(https://gtexportal.org/home/)获取,R 软件 Limma 包用于研究mRNA 的 差 异 表 达。对数据库中EEF2不同表达水平的肝细胞癌患者生存情况进行分析。设置限定条件如下,(1)Cancer:Hepatocellular carcinoma;(2)Gene:EEF2;(3) Group Cutoff:Median;(4)Axis Units:Months。
1.7细胞周期检测
采用无EDTA的胰酶消化收集HepG2细胞置EP管中,预冷PBS 洗涤3 次,预冷70%乙醇固定,4 ℃保存24 h,细胞再次离心,预冷PBS洗涤2次,室温加入RNase A和PI避光避光孵育30 min,流式细胞仪评估细胞周期各期细胞百分比。
1.8流式细胞仪检测细胞凋亡情况
采用无EDTA的胰酶消化收集HepG2细胞置EP管中,利用无菌PBS漂洗3次,随后按照说明书处理细胞样本,1 h内上机完成检测,每组重复3次。
1.9 Western blot 检测bcl-2、cleaved caspase-3、CDK2、CCND1、EEF2蛋白表达
收集细胞后用细胞弱裂解液(RIPA∶PMSF=100∶1)破碎细胞膜获得细胞蛋白。采用BCA法定量各组细胞蛋白浓度,加入蛋白上样缓冲液后金属浴10 min使蛋白变性。按照蛋白检测的方法进行电泳及转膜后,放置于一抗溶液(1:1000比例稀释)中,于4 ℃孵育过夜。第2天TBST漂洗3次后,室温放置在羊抗鼠(1∶10 000)或羊抗兔(1∶10000)二抗溶液中孵育2 h,TBST中漂洗3次,每次20min,采用ECL法显色,Image J软件分析目的蛋白灰度值,实验重复3次。
1.10 统计学方法
用Graphpad Prism软件及SPSS软件进行数据分析。计量资料以均数±标准差(x±s)表示,2 组间比较差异采用独立样本t检验,相关性分析采用Spearman法。P<0.05为差异有统计学意义。
2 结果
2.1 姜黄素、5-氟尿嘧啶降低细胞活力
CCK-8 结果显示,姜黄素与5-氟脲嘧啶能够降低HepG2细胞的活力,且呈浓度依赖性降低(图 1)。取5 µmol/L的姜黄素与2 µmol/L的5-氟尿嘧啶进行后续实验。
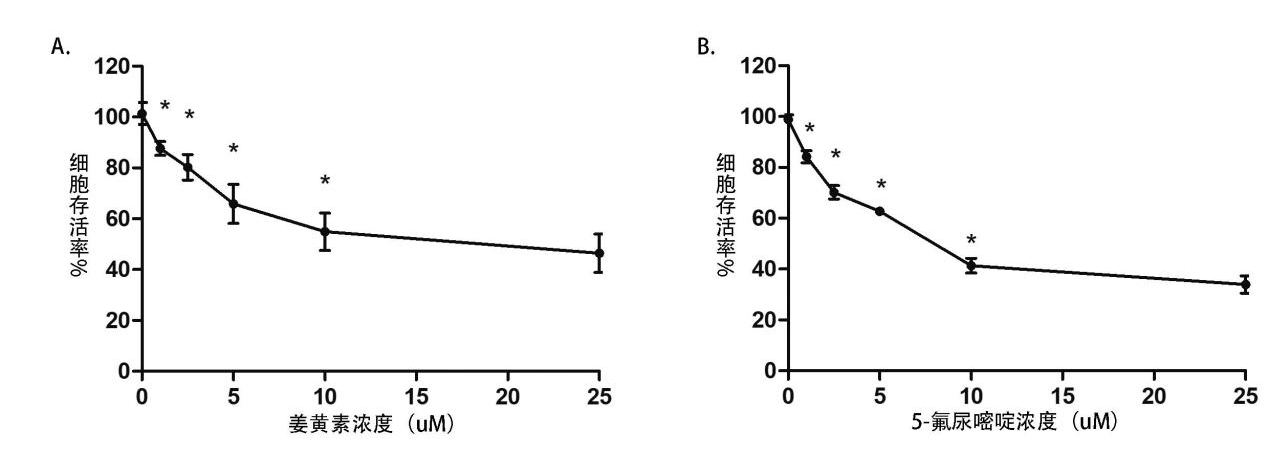
图1 姜黄素和5-氟尿嘧啶抑制HepG2细胞的增殖
2.2 姜黄素、5-氟尿嘧啶抑制细胞周期
与单药组比较,姜黄素联合5-氟尿嘧啶组 G0/G1 细胞比例显著增加,G2/M 细胞比例显著增加,S 期无明显变化(P<0.05)(图 2)。结果表明,姜黄素联合5-氟尿嘧啶导致细胞在G0/G1期发生明显更显著的细胞周期阻滞。
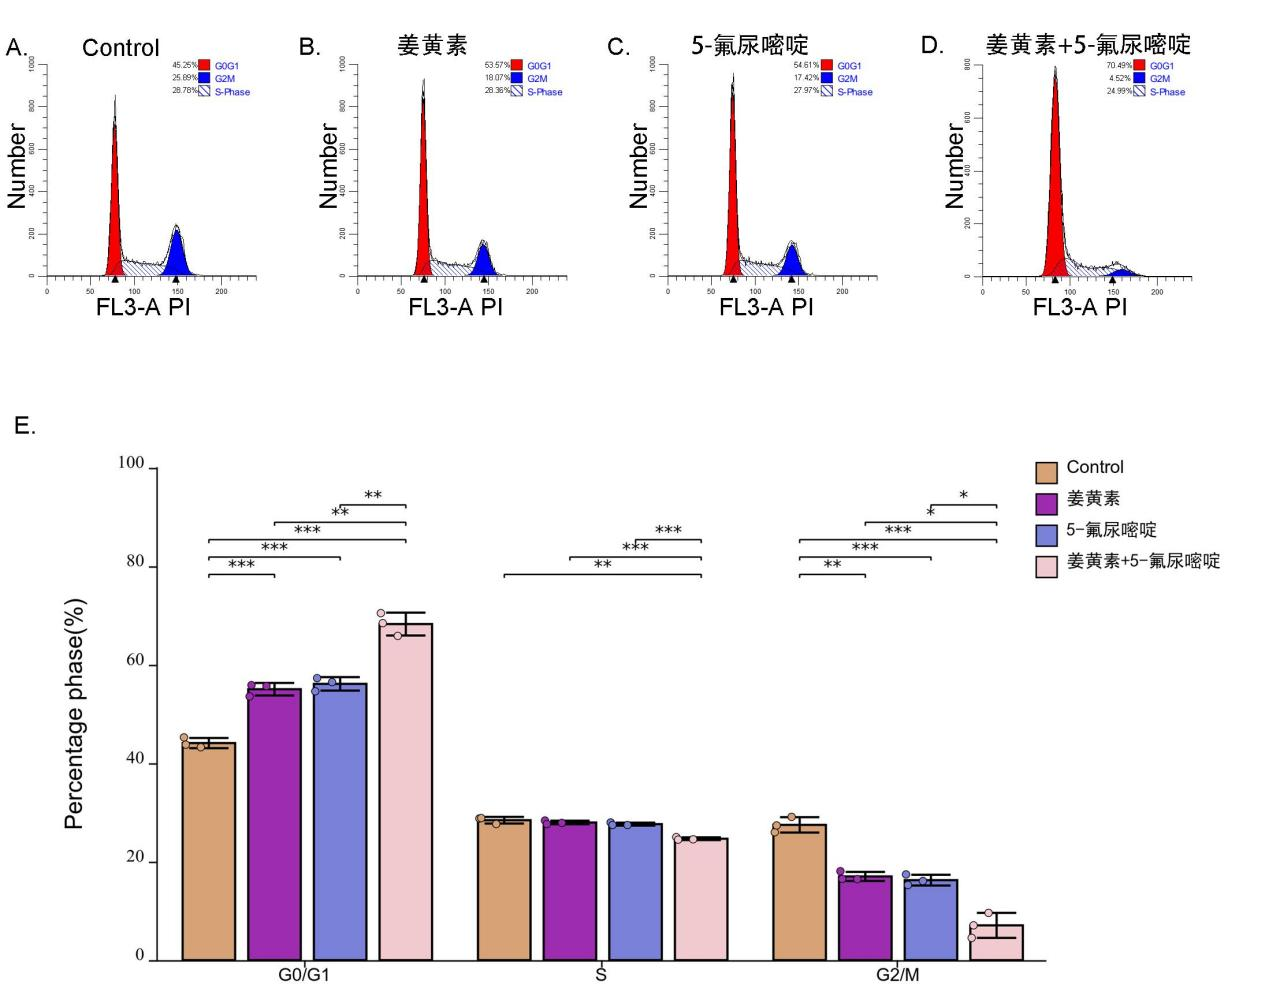
图2 各组细胞周期比较
2.3 姜黄素、5-氟尿嘧啶促进细胞凋亡
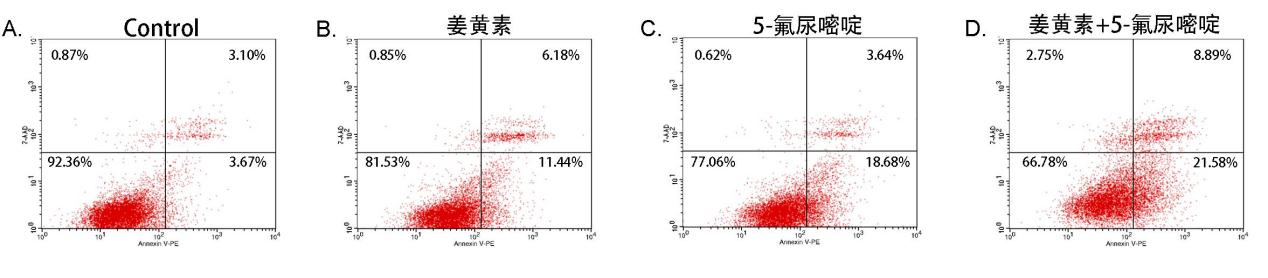 处理 HepG2 细胞24h 后,对照组、单药组和联合组细胞凋亡率分别为,各组间细胞凋亡率比较差异有统计学意义(P<0. 05)。与单药组比较,联合组细胞凋亡率升高(P<0. 05)(图 3)。
图3 流式细胞术检测各组细胞凋亡率
2.4 各组细胞中bcl-2、Cleaved Caspase-3、CDK2、CyclinD1蛋白表达情况
与对照组比较,姜黄素组与5-氟尿嘧啶组细胞CDK2、CyclinD1、bcl-2蛋白表达表达减低,Cleaved Caspase-3蛋白表达增加(P<0.05);与单药组比较,姜黄素联合5-氟尿嘧啶组细胞CDK2、CyclinD1、bcl-2蛋白表达显著降低,Cleaved Caspase-3蛋白表达显著增加(P<0.05)(图4)。
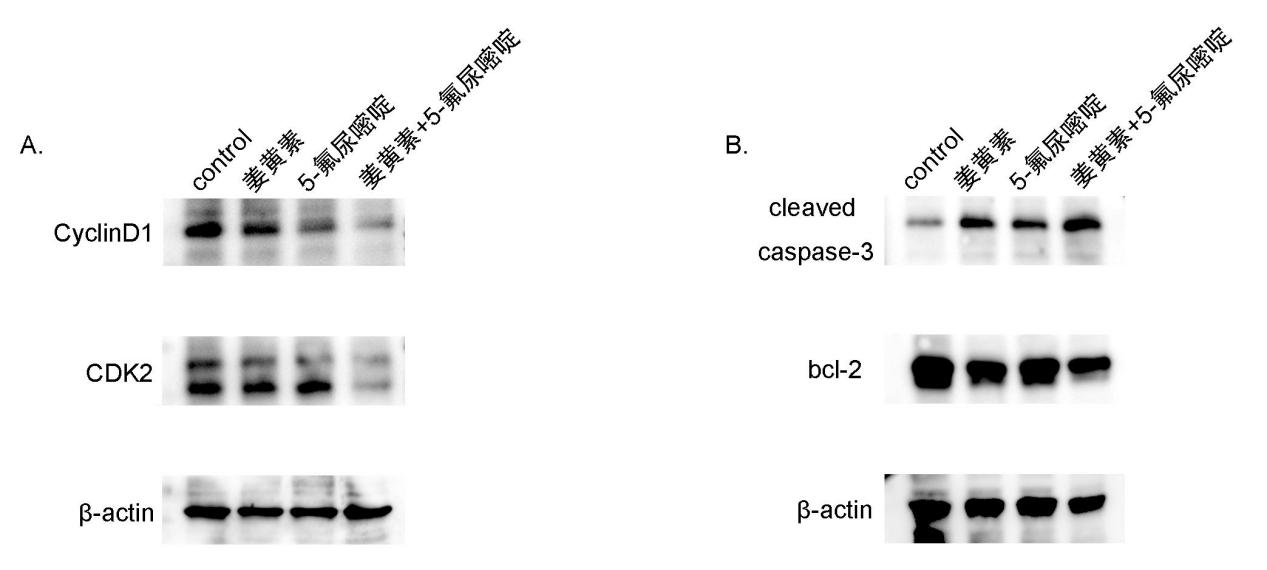
图4 Western blot 检测细胞增殖、凋亡相关蛋白的表达
2.5 EEF2基因表达水平
GEPIA2在线数据库分析发现,与正常组织相比,EEF2在多种肿瘤呈高表达(图5)。相关性分析发现,肝癌患者中EEF2的表达与预后指标AFP呈正相关(rs=0.3,P<0.01)(图6)。对EEF2不同表达水平的肝细胞癌患者生存情况进行分析,低EEF2表达的患者组总体生存率更高(图7)。
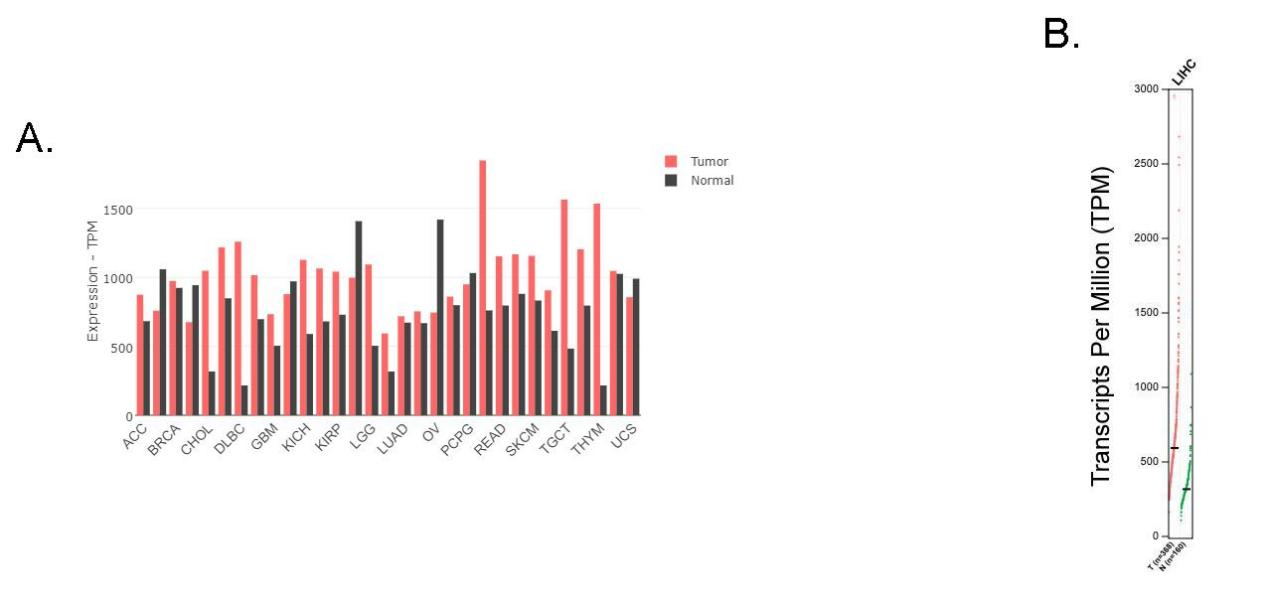
图5 EEF2在肿瘤组织及健康人组织mRNA表达量比较
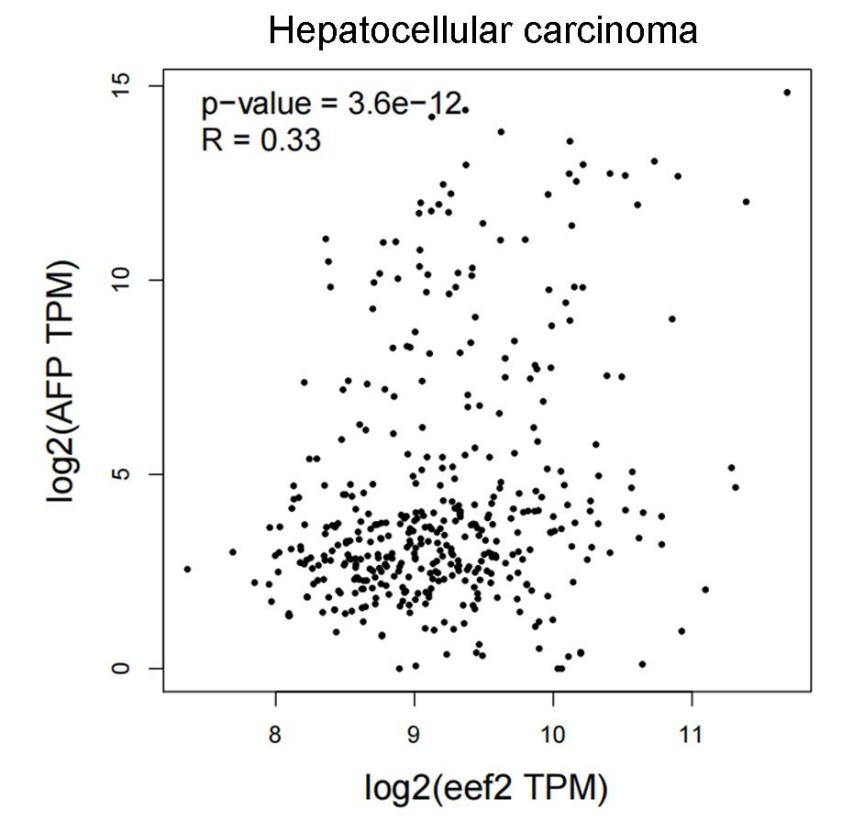
图6 EEF2与AFP表达量的相关性
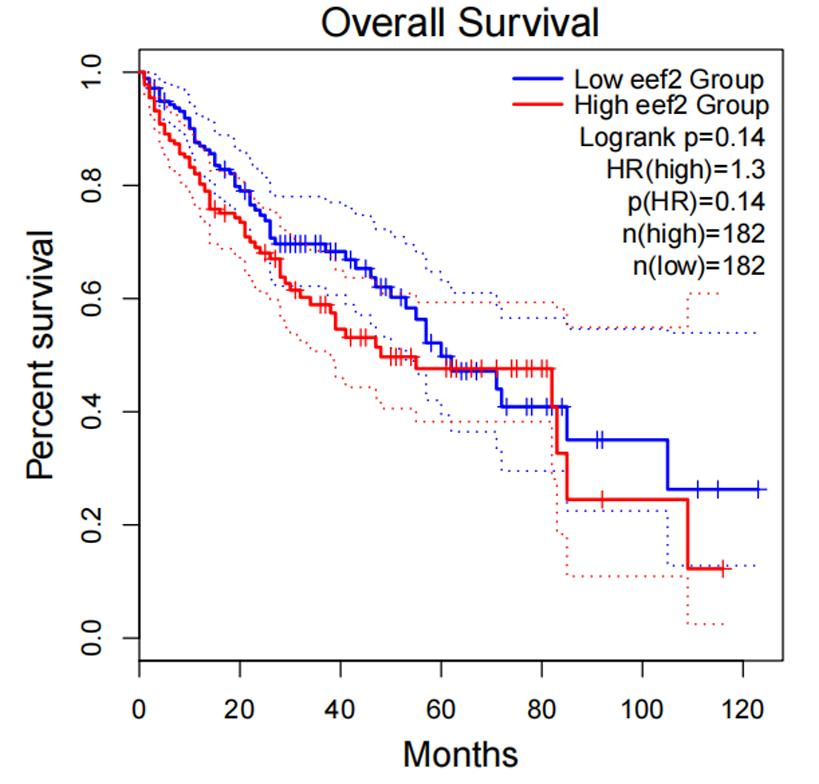
图7 EEF2表达与肝癌患者总体生存率
2.6 各组细胞中EEF2蛋白表达水平
Western blot 结果显示,与对照组相比,姜黄素组与姜黄素联合5-氟尿嘧啶组的EEF2蛋白表达显著降低(P<0.05)(图8)。
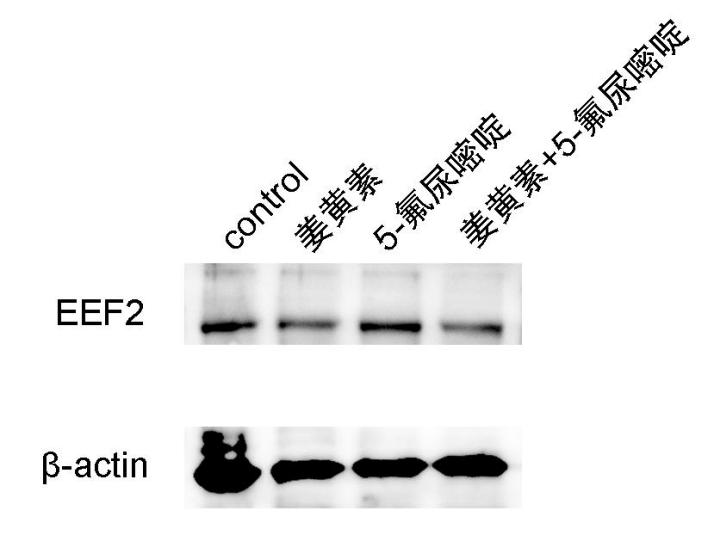
图8 Western blot检测EEF2表达情况
2.7 干扰EEF2表达对细胞增殖、凋亡的影响
流式细胞术结果显示,与正常细胞相比,干扰EEF2表达后,细胞的凋亡率显著升高(图9)。
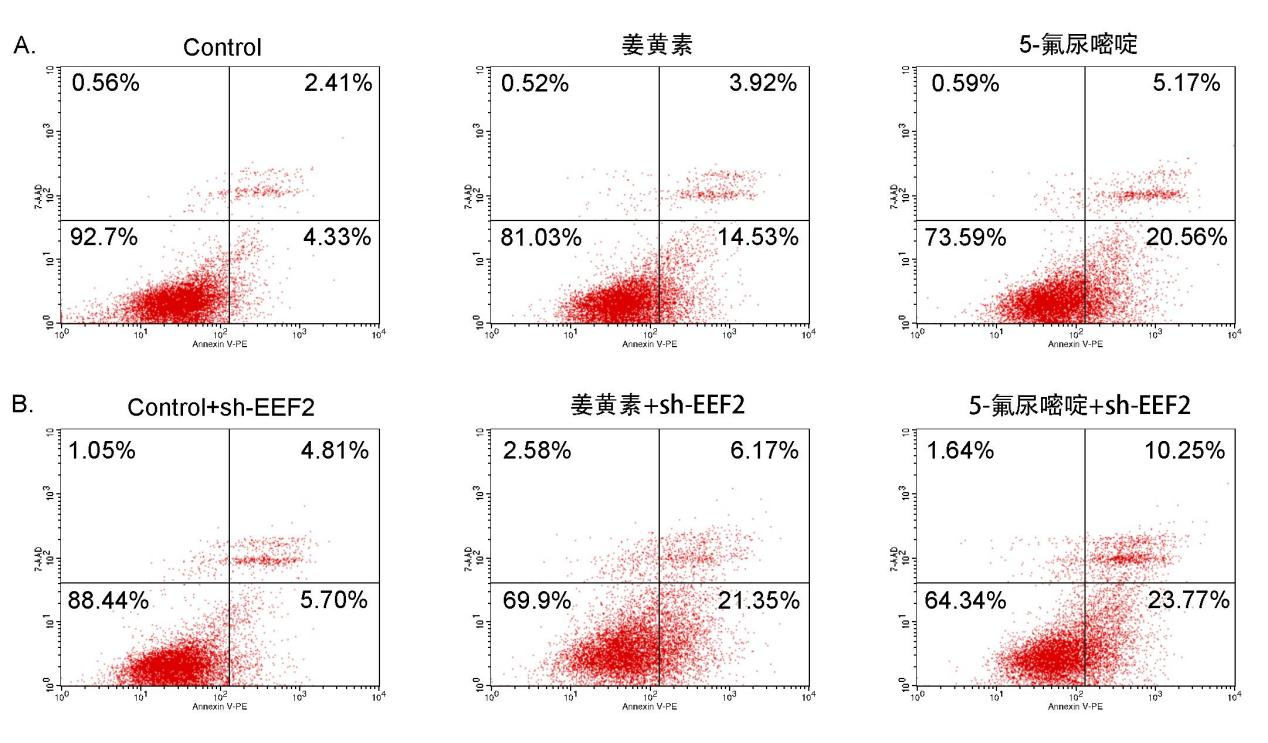
图9 流式细胞术检测细胞凋亡
2.8 干扰EEF2表达对细胞AKT/mTOR信号通路的影响
与对照组比较,干扰EEF2表达组细胞AKT、mTOR蛋白表达显著降低(P<0.05)(图10)。
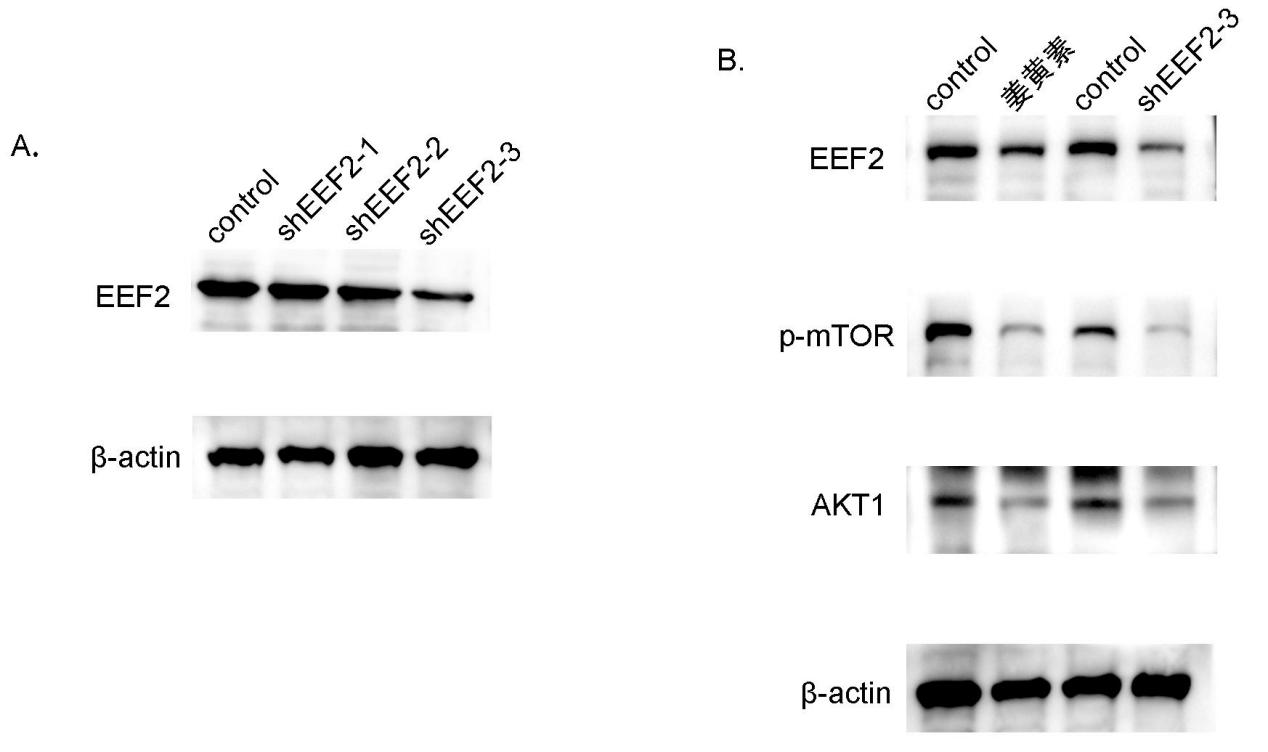
1. 图10 Western blot 检测AKT/mTOR信号通路相关蛋白表达
2. 3 讨论
3. 肝细胞癌是最常见的肝癌类型,影像学检查(如超声、CT、MRI)和血清学检测(如甲胎蛋白AFP)是主要的筛查手段。目前通过分子靶向药物和免疫疗法可以改善患者预后,如索拉非尼和帕博利珠单抗,可以使晚期HCC生存获益[15,16]。这些疗法与传统方法的结合,如经动脉化疗栓塞(TACE)和肝动脉输注化疗(HAIC)[17,18],正在探索提高疗效和改善患者预后。此外,目前的研究集中在肿瘤微环境在肝癌进展和治疗抗性中的作用,包括探索炎症对治疗效果的影响[19-21]。尽管在肝癌的研究领域取得了一定的进展,但肝癌患者晚期对化疗的耐受仍然是治疗失败的主要原因之一。如何改善化疗耐受患者的预后仍是一个重要的临床问题。
4. 肝癌的发生与多种分子机制密切相关,尤其是细胞信号通路的异常激活。常见的信号通路包括Wnt/β-catenin、PI3K/Akt、MAPK以及p53通路等[22-25]。已有研究表明,姜黄素能够通过调节这些信号通路来抑制肝癌细胞的增殖和转移[26]。此外,姜黄素还可以通过诱导肝癌细胞的凋亡和抑制肿瘤生长来增强现有化疗药物的疗效。
5. 本项研究结果显示,姜黄素联合5-氟尿嘧啶对HepG2细胞具有更好的抑制增殖和促进凋亡的效果。研究表明,EEF2的过表达提示肝细胞癌的预后不良,抑制EEF2活性可使肿瘤细胞对化疗药物的敏感性增高。实验结果表明,EEF2与AFP呈正相关;EEF2低表达的患者OS更高;此外,姜黄素能够降低EEF2的表达,干扰EEF2的表达后细胞中AKT和mTOR的磷酸化水平明显降低,而上游分子PI3K活性几乎不受影响。这些说明姜黄素与5-氟尿嘧啶对HepG2细胞的有协同作用,其机制与EEF2的表达有关。
6. 综上所述,姜黄素可抑制EEF2表达,进而影响AKT/mTOR 信号通路抑制HCC细胞增殖、促进细胞凋亡。虽然这对于制定有效的治疗策略,以改善患者的预后将至关重要,也为肝癌的防治提供了新的思路和策略。然而,本研究未在小鼠体内进行实验,下一步将结合动物实验进一步验证。
7. 参考文献:
8. Ladd AD, Duarte S, Sahin I, Zarrinpar A. Mechanisms of drug resistance in HCC. Hepatology. 2024;79(4):926-940.
9. Ma L, Xu A, Kang L, et al. LSD1-Demethylated LINC01134 Confers Oxaliplatin Resistance Through SP1-Induced p62 Transcription in HCC. Hepatology. 2021;74(6):3213-3234.
10. Ladd AD, Duarte S, Sahin I, Zarrinpar A. Mechanisms of drug resistance in HCC. Hepatology. 2024;79(4):926-940.
11. Esatbeyoglu T, Huebbe P, Ernst IM, Chin D, Wagner AE, Rimbach G. Curcumin--from molecule to biological function. Angew Chem Int Ed Engl. 2012;51(22):5308-5332.
12. Weng W, Goel A. Curcumin and colorectal cancer: An update and current perspective on this natural medicine. Semin Cancer Biol.
13. Yallapu MM, Khan S, Maher DM, et al. Anti-cancer activity of curcumin loaded nanoparticles in prostate cancer. Biomaterials. 2014;35(30):8635-8648.
14. Patra S, Pradhan B, Nayak R, et al. Chemotherapeutic efficacy of curcumin and resveratrol against cancer: Chemoprevention, chemoprotection, drug synergism and clinical pharmacokinetics. Semin Cancer Biol. 2021;73:310-320.
15. Gao R, Gu Y, Yang Y, et al. Robust radiosensitization of hemoglobin-curcumin nanoparticles suppresses hypoxic hepatocellular carcinoma. J Nanobiotechnology. 2022;20(1):115.
16. Zheng Y, Jia R, Li J, Tian X, Qian Y. Curcumin- and resveratrol-co-loaded nanoparticles in synergistic treatment of hepatocellular carcinoma. J Nanobiotechnology. 2022;20(1):339. Published 2022 Jul 20.
17. Barui S, Saha S, Mondal G, Haseena S, Chaudhuri A. Simultaneous delivery of doxorubicin and curcumin encapsulated in liposomes of pegylated RGDK-lipopeptide to tumor vasculature. Biomaterials.
相关文献推荐
- 节点文献
- 读者推荐
- 相关基金文献
- 关联作者
- 相关视频
- 批量下載
